As linhagens avícolas modernas foram selecionadas para alcançar crescimento rápido, melhor conversão alimentar e alta produtividade (Zulkifli et al., 2011). Embora esse progresso genético tenha melhorado o desempenho, ele também aumentou a produção de calor metabólico e reduziu a termotolerância (Figura 1). À medida que a temperatura ambiente ultrapassa a faixa de termoneutralidade, as aves passam por alterações fisiológicas e metabólicas, incluindo menor consumo de ração, redistribuição de energia e mudanças no uso dos nutrientes, o que as predispõe ao estresse oxidativo (Geraert et al., 1996; Cassuce et al., 2013; Scanes and Dridi, 2022). O estresse oxidativo é definido como um desequilíbrio em favor das espécies reativas de oxigênio (ROS) em relação às defesas antioxidantes, podendo contribuir, em última instância, para perdas em crescimento e eficiência.
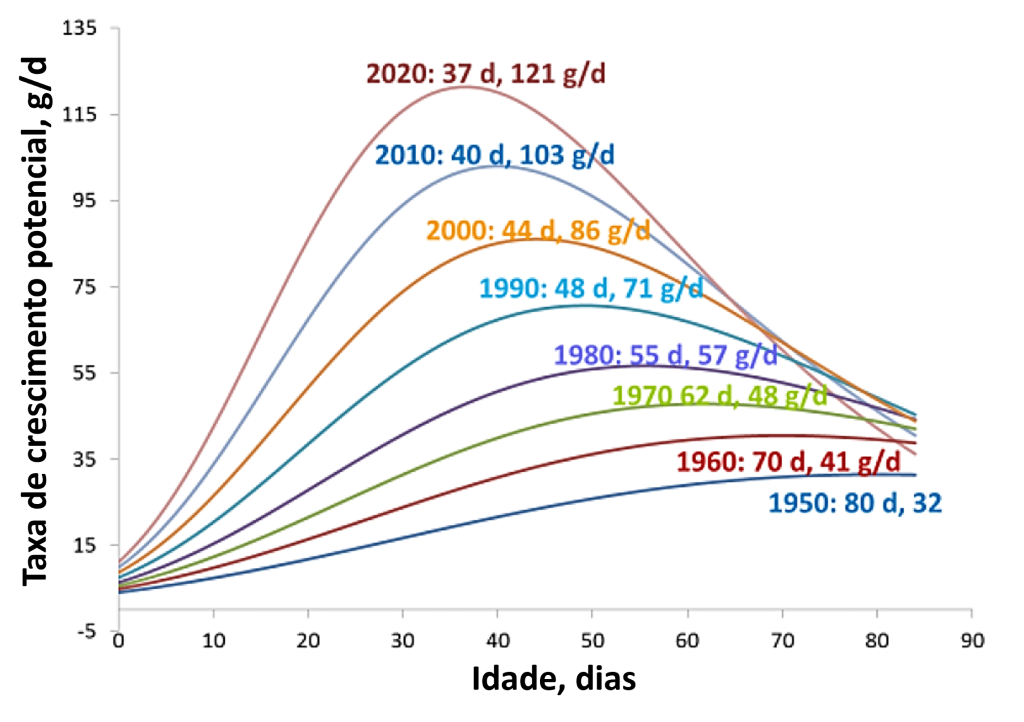
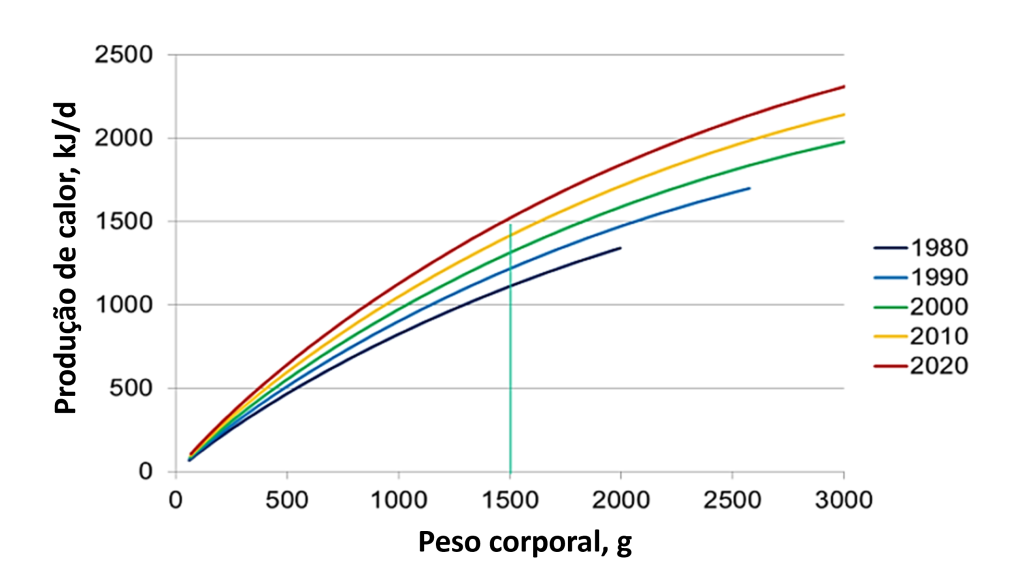
Figura 1: O progresso genético em frangos de corte aumentou a taxa de crescimento juntamente com a produção de calor metabólico. Taxa de crescimento estimada (acima) e produção de calor em relação ao peso corporal (abaixo) ao longo das décadas. Adaptado de Schothorst Feed Research, 2024.
Em condições atuais de produção, o estresse oxidativo raramente se origina de um único fator. Em vez disso, resulta da convergência de múltiplos desafios ambientais, nutricionais, de manejo e biológicos, que frequentemente ocorrem de forma simultânea (Figura 2).
1. Principais fatores que favorecem o estresse oxidativo na produção avícola:
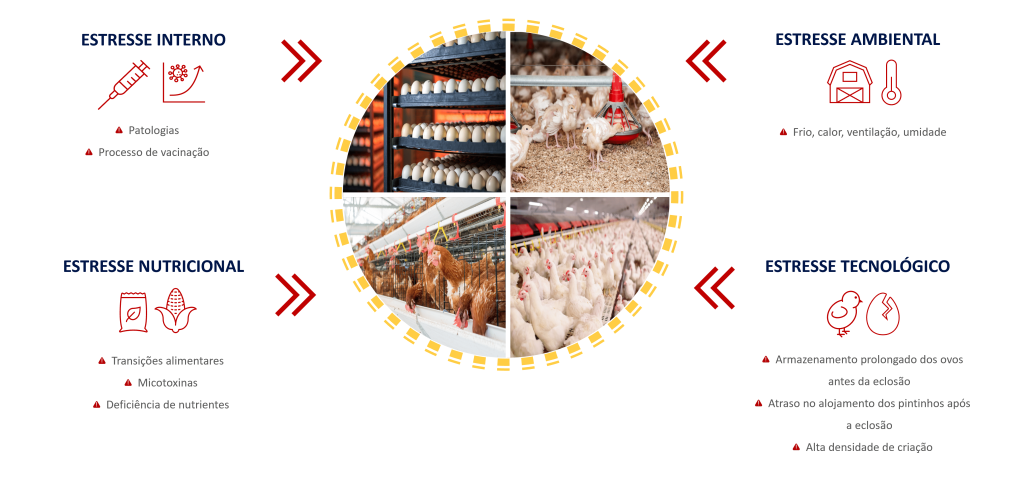
Figura 2: Principais fatores de estresse na produção avícola. Adaptado de Surai et al., 2019.
1.1. Nuances associadas à linhagem genética e à idade:
Os frangos de corte de crescimento rápido são mais suscetíveis ao estresse oxidativo do que linhagens de crescimento mais lento, refletindo diferenças na forma como as defesas antioxidantes se adaptam durante o desenvolvimento. Em particular, frangos de corte de crescimento rápido parecem depender mais da glutationa redutase (GR), um marcador da reciclagem antioxidante, enquanto frangos de corte de crescimento lento mantêm uma atividade mais estável da superóxido dismutase (SOD), sugerindo maior capacidade de sustentar a primeira linha de defesa antioxidante nos diferentes tecidos (Figura 3).
As fases iniciais da vida também são marcadas por mudanças rápidas na proteção antioxidante: algumas defesas, como as peroxidases e a GR, diminuem logo após a eclosão; a catalase (CAT) atinge um pico precoce e depois diminui, enquanto a SOD se torna progressivamente mais importante com a idade (Figura 3) (Coudert et al., 2023).
Essas adaptações ajudam a explicar por que a suscetibilidade ao estresse oxidativo — e seu custo biológico — varia de acordo com a linhagem genética e a idade, destacando a importância de considerar tanto a origem genética quanto a fase de desenvolvimento em condições comerciais.
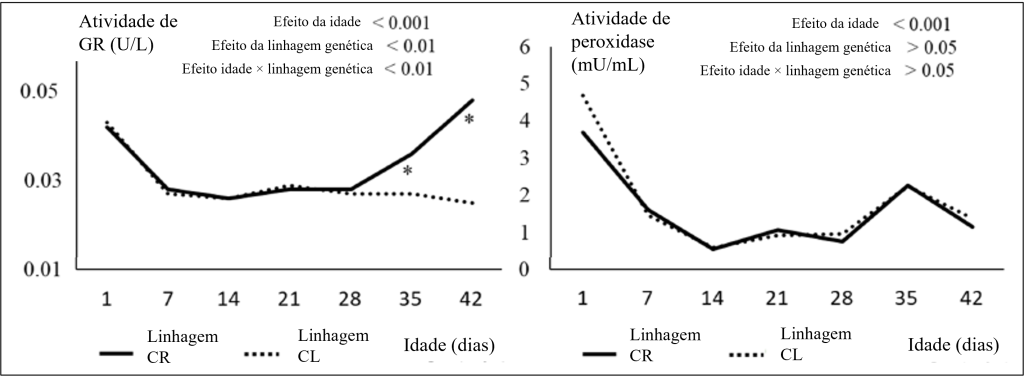
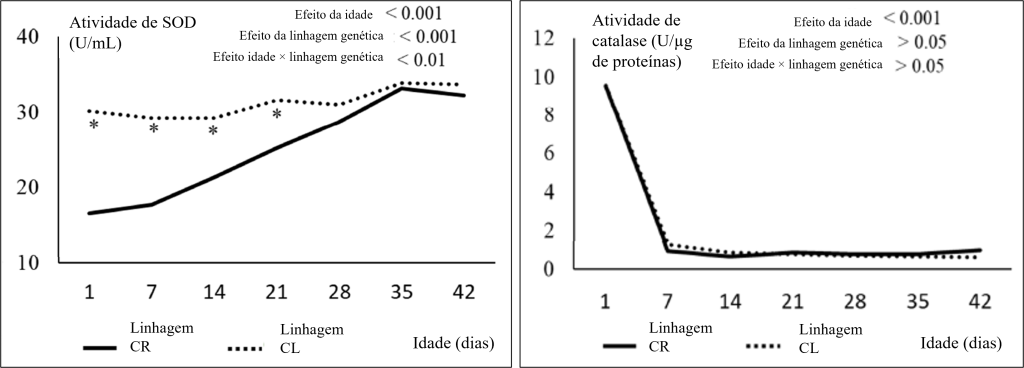
Figura 3: Efeitos da idade e da linhagem genética —CR = crescimento rápido; CL = crescimento lento— sobre a atividade de enzimas antioxidantes (GR plasmática, peroxidase, SOD e catalase no músculo peitoral). Os dados correspondem às médias (n = 10 por linhagem genética e idade). *Diferença significativa entre linhagens genéticas em uma determinada idade (p < 0,05) (Coudert et al., 2023).
1.2. Ambiente e manejo:
Os sistemas de produção comercial expõem as aves a fatores de estresse ambientais e de manejo que aumentam a pressão oxidativa e desafiam as defesas antioxidantes (Oke et al., 2024). Na prática, uma alta densidade de alojamento frequentemente coincide com baixa qualidade do ar e ventilação limitada; quando essas condições se combinam com temperaturas ambientais elevadas, intensificam o estresse térmico e prejudicam o desempenho animal.
1.3. Temperatura e ondas de calor:
O aumento da temperatura ambiente e a maior frequência de ondas de calor estão entre os desafios mais visíveis para o desempenho avícola. Essas condições aumentam o risco de estresse oxidativo ao favorecer a formação de ROS e dificultar a termorregulação (Oke et al., 2024; Zaboli et al., 2019). Sob estresse térmico, as aves aumentam o esforço respiratório para dissipar calor, enquanto o consumo de ração e o uso dos nutrientes se tornam menos eficientes, desviando recursos do crescimento para funções de manutenção (Hu et al., 2019; Scanes and Dridi, 2022). Em condições de campo, essas mudanças se traduzem em menor desempenho e pior conversão alimentar.
1.4. Exposição a toxinas na dieta:
A qualidade da ração é uma via crítica de entrada para o estresse oxidativo, uma vez que as aves podem ser expostas a micotoxinas, ingredientes oxidados, gorduras contaminadas ou metais. Esses contaminantes podem aumentar a produção de ROS, inibir as defesas antioxidantes, comprometer a integridade tecidual e epitelial e reduzir a capacidade de absorção intestinal, especialmente quando a exposição é prolongada ou combinada (Omar, 2013; Oke et al., 2024; Zhao et al., 2017; Wang et al., 2018). Em conjunto, a qualidade da ração representa um ponto-chave de controle para limitar o estresse oxidativo, preservar a função de barreira intestinal e sustentar o desempenho animal em condições de campo (Dahlke et al., 2015; Oke et al., 2024).
1.5. Microrganismos:
A pressão microbiana é um desafio recorrente que pode afetar a integridade intestinal, a ativação imune e o desempenho das aves. Durante uma infecção, o sistema imune é ativado e as células fagocíticas geram ROS para eliminar patógenos por meio de um mecanismo de defesa conhecido como “explosão oxidativa”; no entanto, quando essa resposta supera a capacidade antioxidante, o mesmo mecanismo protetor pode contribuir para o estresse oxidativo no hospedeiro (Kogut et al., 2020; Slauch, 2011). As alterações microbianas podem amplificar a pressão oxidativa e a disfunção da barreira intestinal, associando o estresse microbiano à queda de desempenho.
Em conjunto, esses fatores de estresse submetem as aves a uma pressão oxidativa sustentada, com consequências cumulativas e frequentemente subestimadas sobre o desempenho, a saúde e a qualidade do produto.
2. O custo subestimado do estresse oxidativo:
2.1. Crescimento, consumo de ração e conversão alimentar:
Em condições de campo, o estresse oxidativo se manifesta primeiro por meio de menor consumo de ração, uso menos eficiente dos nutrientes e menor desempenho de crescimento. Ao prejudicar a digestão e a absorção, e ao desviar energia para a defesa antioxidante e os processos de reparo, o estresse oxidativo afeta diretamente a conversão alimentar e a produtividade (Oke et al., 2024).
2.2. Saúde intestinal e imunidade:
O trato gastrointestinal está constantemente exposto a fatores de estresse nutricionais e microbianos, tornando-se particularmente vulnerável ao estresse oxidativo. Quando o equilíbrio oxidativo é alterado, a integridade intestinal é comprometida, a absorção diminui, a suscetibilidade a doenças aumenta e o crescimento é ainda mais afetado (Kim et al., 2023; Oke et al., 2024). Manter as defesas imunes sob estresse oxidativo também requer energia que, em outras condições, poderia ser direcionada ao crescimento e às funções produtivas (Oke et al., 2024).
2.3. Reprodução e qualidade do ovo:
O estresse oxidativo pode comprometer o desempenho reprodutivo, assim como a qualidade do ovo e do sêmen, ao danificar lipídios, proteínas e DNA em células e tecidos reprodutivos (Oke et al., 2024). Na prática, isso pode contribuir para cascas mais frágeis, alterações na consistência do albúmen, menor qualidade da gema e prejuízos ao desenvolvimento embrionário (Jin et al., 2022). Em machos, o excesso de ROS está associado à fragmentação do DNA espermático e à menor motilidade, reduzindo, em última instância, a fertilidade (Khan, 2011).
2.4. Qualidade da carne:
O estresse oxidativo durante a criação e o processamento favorece a oxidação de lipídios e proteínas no músculo, deteriorando a cor, o sabor, a textura e o valor nutricional da carne. Também pode contribuir para o desenvolvimento de miopatias, como estriação branca (white striping) e peito amadeirado (wooden breast) (Carvalho et al., 2017; Shakeri et al., 2018). Em conjunto, o estresse oxidativo afeta não apenas o desempenho em vida, mas também a qualidade e o valor dos produtos avícolas.
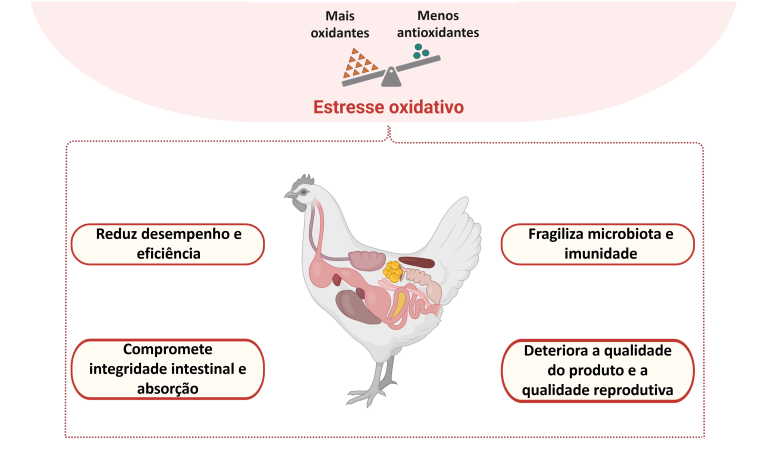
Figura 4: Consequências do estresse oxidativo em avicultura. Criado no BioRender.
Em resumo, o estresse oxidativo implica custos cumulativos e frequentemente subestimados para o desempenho, a saúde e a qualidade do produto, que dependem não apenas da exposição a fatores de estresse, mas também da forma como as aves regulam e respondem aos desafios oxidativos.
3. Como as aves respondem ao estresse oxidativo: dos sinais oxidativos à defesa antioxidante:
As ROS são produzidas naturalmente durante o metabolismo normal. Em níveis controlados, atuam como moléculas de sinalização que ajudam as células a se adaptar a mudanças metabólicas ou ambientais. Essa resposta benéfica e transitória é conhecida como “eustresse oxidativo”. Quando a produção de ROS supera a capacidade de detoxificação da ave, esse equilíbrio se desloca para o “distresse oxidativo”, uma condição em que as ROS deixam de apoiar a adaptação e passam a contribuir para danos celulares, disfunção tecidual e queda de desempenho (Gessner et al., 2016; Surai et al., 2019; Oke et al., 2024) (Figura 5).
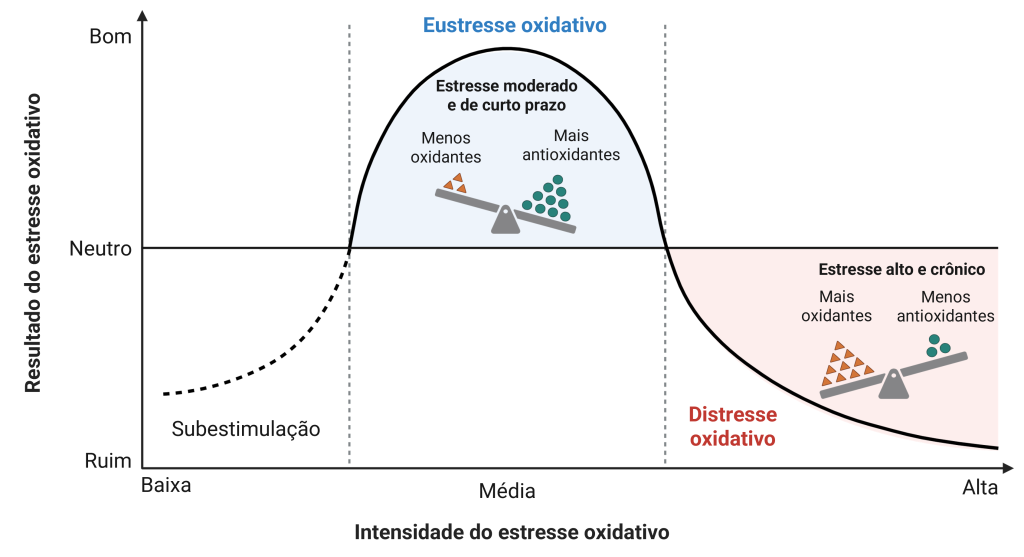
Figura 5: Relação entre o equilíbrio oxidante-antioxidante e as consequências do estresse oxidativo. Criado no BioRender.
Para manter esse equilíbrio, as aves dependem de uma rede antioxidante coordenada, composta por defesas enzimáticas e não enzimáticas. Na prática, esse sistema desempenha quatro funções essenciais: limita a formação de ROS, neutraliza oxidantes, interrompe reações oxidativas em cadeia e repara ou remove componentes celulares danificados (Figura 6) (Panda and Cherian, 2014; Surai et al., 2019).
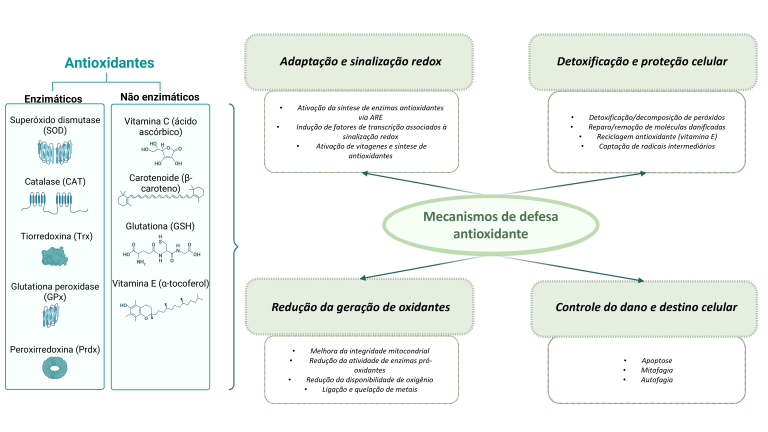
Figura 6: Mecanismos de defesa antioxidante. Adaptado de Surai et al., 2019. Criado en BioRender.
Mesmo com um sistema antioxidante eficaz, os fatores de estresse presentes em condições comerciais podem superar a capacidade de adaptação da ave. Nesse ponto, as estratégias nutricionais e de manejo tornam-se importantes para apoiar a proteção antioxidante, a adaptação e o reparo.
4. Nutrição direcionada para o controle do estresse oxidativo:
Em condições de estresse, o objetivo não é substituir as defesas antioxidantes endógenas da ave, mas mantê-las ativas e capazes de se adaptar a uma maior pressão oxidativa. Ferramentas nutricionais como vitamina E, selênio, metionina e compostos de origem vegetal podem contribuir para sustentar essa capacidade de adaptação. Entre eles, os polifenóis são de particular interesse, pois podem contribuir não apenas para limitar o dano oxidativo, mas também para apoiar a adaptação antioxidante e a resiliência (Lipiński et al., 2017). Os polifenóis são metabólitos secundários das plantas presentes em grãos, frutas, chá e numerosos extratos botânicos. São reconhecidos por seus efeitos antioxidantes, embora os mecanismos envolvidos e a contribuição relativa das vias diretas ainda estejam em estudo. No entanto, os polifenóis despertam interesse crescente porque podem apoiar as defesas antioxidantes endógenas, modular vias inflamatórias como Nrf2 e NF‑κB (Surai, 2020) e interagir com a microbiota intestinal. Por exemplo, a farinha fermentada de folhas de Ginkgo biloba aumentou a expressão intestinal de Nrf2 em frangos, um regulador-chave das defesas antioxidantes (Y. Niu et al., 2019). Por meio dessas ações combinadas, os polifenóis ajudam a manter o equilíbrio oxidativo, a integridade intestinal e a resiliência geral das aves.
5. Uma solução nutricional funcional que combina suporte prebiótico e antioxidante:
5.1. CalseaGrow: desenvolvido para responder a desafios comerciais persistentes
Ao longo do ciclo de produção, as aves são expostas a múltiplas fontes de estresse (Figura 2) e, portanto, dependem de reservas antioxidantes adequadas para manter o equilíbrio fisiológico. Nesse contexto, o manejo do lote e a nutrição orientada desempenham um papel-chave no suporte à saúde e ao desempenho.
Dentro dessa abordagem, a Phosphea desenvolveu CalseaGrow, uma matéria-prima funcional para espécies monogástricas que combina suporte prebiótico e antioxidante. À base de extrato cítrico e algas calcificadas, CalseaGrow foi desenvolvido para contribuir para a reserva antioxidante, apoiar a função intestinal, a absorção de nutrientes e a utilização de minerais. Sua forma microgranulada permite incorporação homogênea a 1 kg/t, tornando-o adequado tanto para sistemas de produção convencionais quanto orgânicos.
5.2. Suporte ao status antioxidante e à qualidade do ovo no final do ciclo de postura
Um ensaio realizado com galinhas poedeiras durante a fase final de produção mostrou que a suplementação com CalseaGrow melhorou tanto as reservas antioxidantes sistêmicas quanto a qualidade interna do ovo no final do ciclo de postura.
Neste estudo, 574 poedeiras, com 68 a 79 semanas de idade, receberam uma dieta controle ou CalseaGrow a 1 kg/t durante um período de 10 semanas. Entre as semanas 74 e 78, o status antioxidante foi avaliado por meio do teste RESEDA, que mede a eficácia das defesas antirradicais circulantes em uma amostra de sangue e permite liberar as diferentes reservas de antioxidantes contidas nas células. Durante esse teste, os antioxidantes armazenados são liberados pela adição de diferentes enzimas: glucosidase para as reservas R1, sulfatase para as reservas R2 e glucuronidase para as reservas R3. Também foram avaliados parâmetros de qualidade do ovo, como a rigidez da membrana vitelina, no final do ensaio.
A suplementação com CalseaGrow aumentou a reserva antioxidante, refletida por um maior tempo de meia-hemólise (T1/2) nas frações de reserva R1 e R3, indicando maior resistência ao dano oxidativo (Figura 7). Essa melhora do status antioxidante foi associada a melhorias mensuráveis na qualidade interna do ovo.
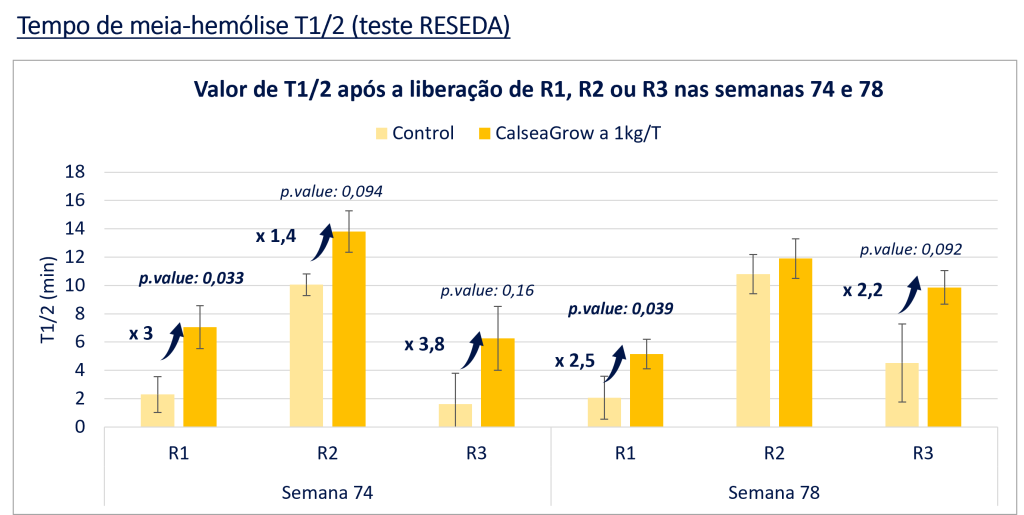
Figura 7: Efeito de CalseaGrow sobre as reservas antioxidantes em poedeiras, avaliado pelo teste RESEDA. Um maior tempo de meia-hemólise (T1/2) indica melhor resistência à oxidação. CalseaGrow (1 kg/t) aumentou os valores de T1/2, principalmente nas frações de reserva R1 e R3. O teste RESEDA é um método patenteado desenvolvido pelo Dr. Michel Prost (2013).
Durante o estresse oxidativo, os radicais livres podem causar danos celulares, incluindo peroxidação lipídica e oxidação de proteínas. A membrana vitelina, composta por lipídios, é um dos parâmetros essenciais relacionados à qualidade do ovo e ao desenvolvimento embrionário. CalseaGrow mostrou uma melhora significativa da rigidez da membrana, com aumento de 2,4% na semana 78 (Figura 8).
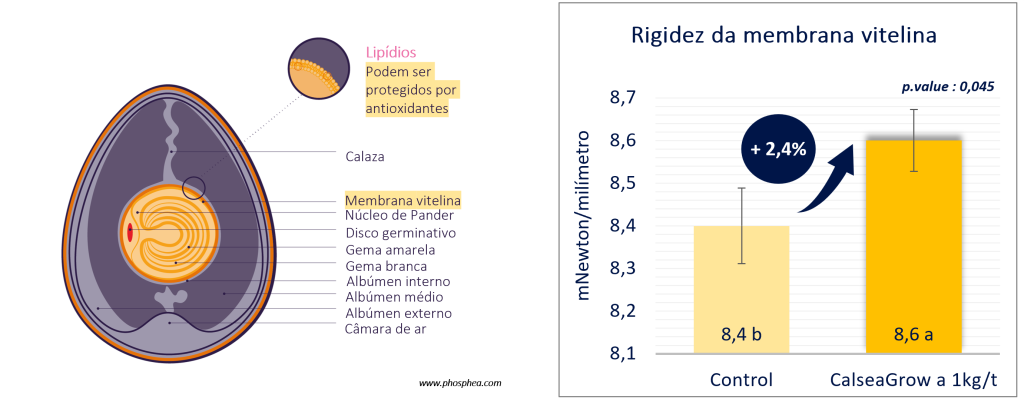
Figura 8: Efeito de CalseaGrow sobre a rigidez da membrana vitelina. A suplementação com CalseaGrow (1 kg/t) aumentou significativamente a rigidez da membrana vitelina, sugerindo maior proteção das estruturas do ovo ricas em lipídios contra o estresse oxidativo.
Em conjunto, esses resultados indicam que a inclusão de CalseaGrow na dieta apoia a capacidade antioxidante e contribui para preservar a estrutura e a qualidade do ovo durante as fases finais do ciclo de postura, quando a pressão oxidativa e a vulnerabilidade associada à idade são maiores.
📚 Referências bibliográficas:
Boveris, A., & Chance, B. (1973). The mitochondrial generation of hydrogen peroxide: General properties and effect of hyperbaric oxygen. Biochemical Journal, 134(3), 707–716.
Carvalho, R., Shimokomaki, M., & Estévez, M. (2017). Poultry meat color and oxidation. In Poultry Quality Evaluation (pp. 133–157). Woodhead Publishing.
Cassuce, D. C., Tinôco, I. D. F., Baêta, F. C., Zolnier, S., Cecon, P. R., & Vieira, M. D. F. (2013). Thermal comfort temperature update for broiler chickens up to 21 days of age. Engenharia Agrícola, 33, 28–36.
Chance, B., Sies, H., & Boveris, A. (1979). Hydroperoxide metabolism in mammalian organs. Physiological Reviews, 59(3), 527–605.
Chen, Z., Xing, T., Li, J., Zhang, L., Jiang, Y., & Gao, F. (2022). Oxidative stress impairs meat quality of broilers by damaging mitochondrial function, affecting calcium metabolism and leading to ferroptosis. Animal Bioscience, 35(10), 1616–1627.
Coudert, E., Baéza, E., Chartrin, P., Jimenez, J., Cailleau-Audouin, E., Bordeau, T., & Berri, C. (2023). Slow and Fast-Growing Chickens Use Different Antioxidant Pathways to Maintain Their Redox Balance during Postnatal Growth. Animals, 13(7), 1160.
Dahlke, F., Gonzales, E., Gadelha, A. C., Maiorka, A., Borges, S. A., & Rosa, A. P. (2015). Development of the digestive tract of broilers fed diets containing different types of fiber. Revista Brasileira de Ciência Avícola, 17(1), 43–50.
Das, K., & Roychoudhury, A. (2014). Reactive oxygen species (ROS) and response of antioxidants as ROS-scavengers during environmental stress in plants. Frontiers in Environmental Science, 2, 53.
Estévez, M. (2015). Oxidative damage to poultry: From farm to fork. Poultry Science, 94(6), 1368–1378.
Geraert, P. A., Padilha, J. C. F., & Guillaumin, S. (1996). Metabolic and endocrine changes induced by chronic heat exposure in broiler chickens: Growth performance, body composition and energy retention. British Journal of Nutrition, 75(2), 195–204.
Gessner, D. K., Ringseis, R., & Eder, K. (2016). Potential of plant polyphenols to combat oxidative stress and inflammatory processes in farm animals. Journal of Animal Physiology and Animal Nutrition, 101(3), 605–628.
Hu, R., He, Y., Arowolo, M. A., Wu, S., & He, J. (2019). Polyphenols as potential attenuators of heat stress in poultry production. Antioxidants, 8(3), 67.
Jin, J., Zhou, Q., Lan, F., Li, J., Yang, N., & Sun, C. (2022). Microbial composition of egg components and its association with hatchability of laying hens. Frontiers in Microbiology, 13, 943097.
Khan, R. U. (2011). Antioxidants and poultry semen quality. World’s Poultry Science Journal, 67(2), 297–308.
Kim, H. W., Lee, S., Hur, S., Kil, D. Y., & Kim, J. H. (2023). Effects of functional nutrients on chicken intestinal epithelial cells induced with oxidative stress. Journal of Animal Science and Technology, 65, e22.
Kogut, M. H., Lee, A., & Santin, E. (2020). Microbiome and pathogen interaction with the immune system. Poultry Science, 99(4), 1906–1913.
Lipiński, K., Mazur‑Kuśnirek, M., Antoszkiewicz, Z., & Purwin, C. (2017). Polyphenols in monogastric nutrition – A review. Annals of Animal Science, 17(1), 41–58.
Oke, O. E., Akosile, O. A., Oni, A. I., et al. (2024). Oxidative stress in poultry production. Poultry Science, 103, 104003.
Omar, H. (2013). Mycotoxins-induced oxidative stress and disease. In Mycotoxins and Their Implications in Food Safety. InTechOpen.
Panda, A. K., & Cherian, G. (2014). Role of vitamin E in counteracting oxidative stress in poultry. The Journal of Poultry Science, 51(2), 109–117.
Scanes, C. G., & Dridi, S. (Eds.). (2022). Sturkie's Avian Physiology (7th ed.). Academic Press.
Schothorst Feed Research (SFR). (2024). Applied poultry nutrition: Minerals [Seminar presentation].
Shakeri, M., Cottrell, J. J., Wilkinson, S., et al. (2018). Betaine and antioxidants improve growth performance, breast muscle development and ameliorate thermoregulatory responses to cyclic heat exposure in broiler chickens. Animals, 8(10), 162.
Slauch, J. M. (2011). How does the oxidative burst of macrophages kill bacteria? Still an open question. Molecular Microbiology, 80(3), 580–583.
Surai, P. F., Kochish, I. I., Fisinin, V. I., & Kidd, M. T. (2019). Antioxidant defence systems and oxidative stress in poultry biology: An update. Antioxidants, 8(7), 235.
Surai, P. F. (2020). Antioxidant systems in poultry biology: Heat stress, vitagenes and performance. Wageningen Academic Publishers.
Wang, Y., Zhao, H., Liu, J., et al. (2018). Copper- and arsenic-induced oxidative stress and immune imbalance are associated with activation of heat shock proteins in chicken intestines. International Immunopharmacology, 60, 64–75.
Niu, Y., Zhang, J. F., Wan, X. L., et al. (2019). Effect of fermented Ginkgo biloba leaves on nutrient utilisation, intestinal digestive function and antioxidant capacity in broilers. British Poultry Science, 60(1), 47–55.
Zaboli, G., Huang, X., Feng, X., & Ahn, D. U. (2019). How can heat stress affect chicken meat quality? A review. Poultry Science, 98(3), 1551–1556.
Zhao, H., He, Y., Li, S., et al. (2017). Subchronic arsenism-induced oxidative stress and inflammation contribute to apoptosis through mitochondrial- and death receptor-dependent pathways in chicken immune organs. Oncotarget, 8(25), 40327–40344.
Zulkifli, I., Al‑Aqil, A., Omar, A. R., Sazili, A. Q., & Rajion, M. A. (2011). Crating and heat stress influence blood parameters and heat shock protein 70 expression in broiler chickens showing different resistance to heat stress. Poultry Science, 90(9), 2045–2050.