Les lignées avicoles modernes ont été sélectionnées pour atteindre une croissance rapide, une meilleure conversion alimentaire et une productivité élevée (Zulkifli et al., 2011). Si ce progrès génétique a permis d’améliorer les performances, il a également augmenté la production de chaleur métabolique et réduit la thermotolérance (Figure 1). Lorsque la température ambiante dépasse la zone de thermoneutralité, les volailles subissent des modifications physiologiques et métaboliques, notamment une baisse de l’ingestion, une réallocation de l’énergie et des changements dans l’utilisation des nutriments, ce qui les prédispose au stress oxydatif (Geraert et al., 1996 ; Cassuce et al., 2013 ; Scanes and Dridi, 2022). Le stress oxydatif se définit comme un déséquilibre en faveur des espèces réactives de l’oxygène (ROS) par rapport aux défenses antioxydantes, pouvant finalement contribuer à des pertes de croissance et d’efficacité.
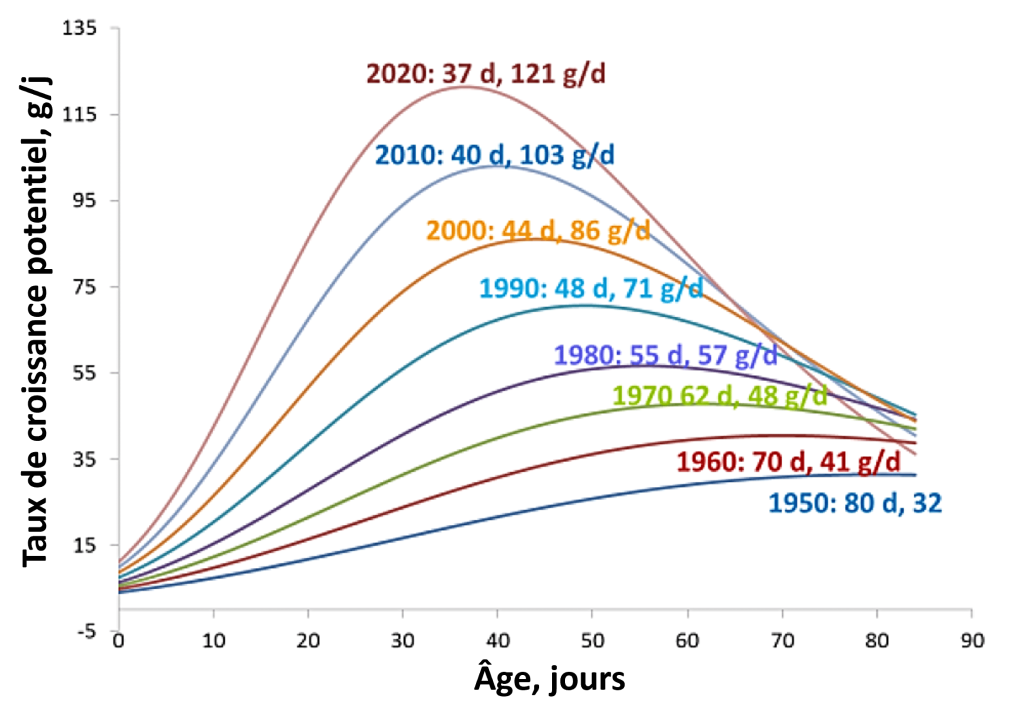
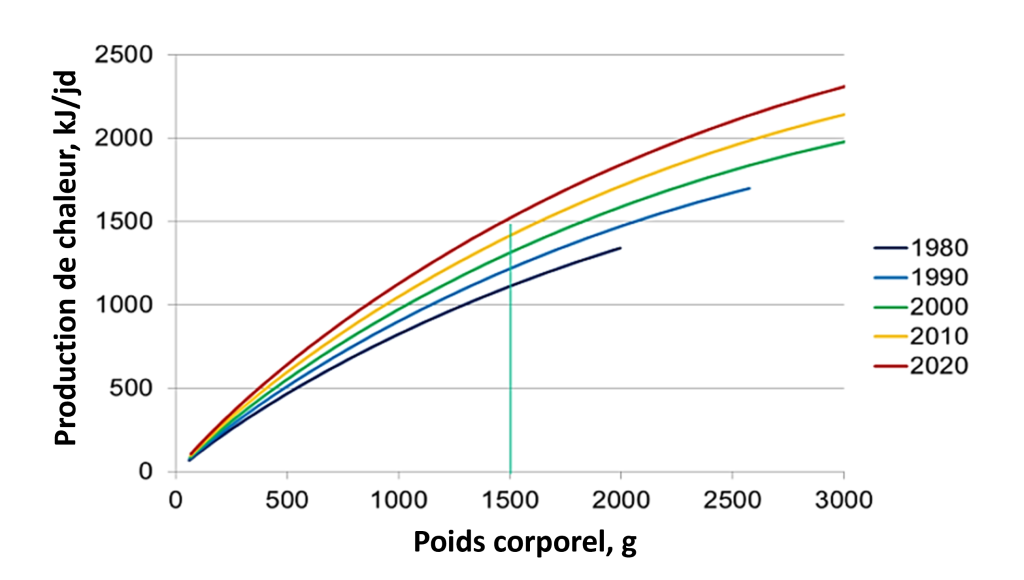
Figure 1 : Le progrès génétique chez les poulets de chair a augmenté le taux de croissance ainsi que la production de chaleur métabolique. Taux de croissance prédit (en haut) et production de chaleur rapportée au poids corporel (en bas) au fil des décennies. Adapté de Schothorst Feed Research, 2024.
Dans les conditions actuelles de production, le stress oxydatif résulte rarement d’un seul facteur. Il apparaît plutôt comme la conséquence de la convergence de multiples défis environnementaux, nutritionnels, zootechniques et biologiques, qui surviennent fréquemment de manière simultanée (Figure 2).
1. Principaux facteurs favorisant le stress oxydatif en production avicole :
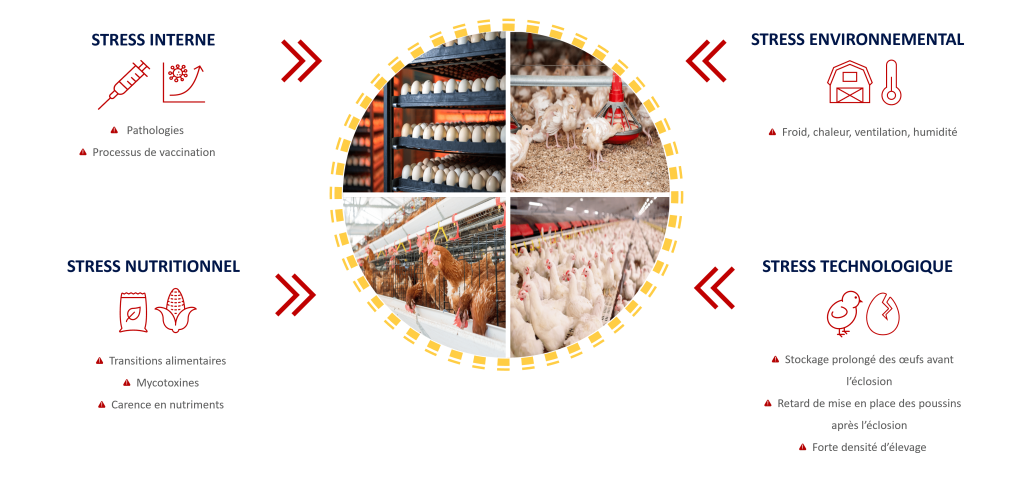
Figure 2 : Principaux facteurs de stress en production avicole. Adapté de Surai et al., 2019.
1.1. Nuances liées à la souche et à l’âge :
Les poulets de chair à croissance rapide sont plus sensibles au stress oxydatif que les souches à croissance plus lente, ce qui reflète des différences dans la manière dont les défenses antioxydantes s’adaptent au cours du développement. En particulier, les poulets à croissance rapide semblent dépendre davantage de la glutathion réductase (GR), un marqueur du recyclage antioxydant, tandis que les poulets à croissance lente maintiennent une activité plus stable de la superoxyde dismutase (SOD), suggérant une plus grande capacité à soutenir la première ligne de défense antioxydante dans les différents tissus (Figure 3).
Les premières étapes de vie sont également marquées par des changements rapides de la protection antioxydante : certaines défenses, comme les peroxydases et la GR, diminuent peu après l’éclosion ; la catalase (CAT) atteint un pic précoce puis diminue, tandis que la SOD prend progressivement plus d’importance avec l’âge (Figure 3) (Coudert et al., 2023). Ces adaptations aident à expliquer pourquoi la sensibilité au stress oxydatif — et son coût biologique — varie selon la souche et l’âge, soulignant l’importance de prendre en compte à la fois l’origine génétique et le stade de développement en conditions commerciales.
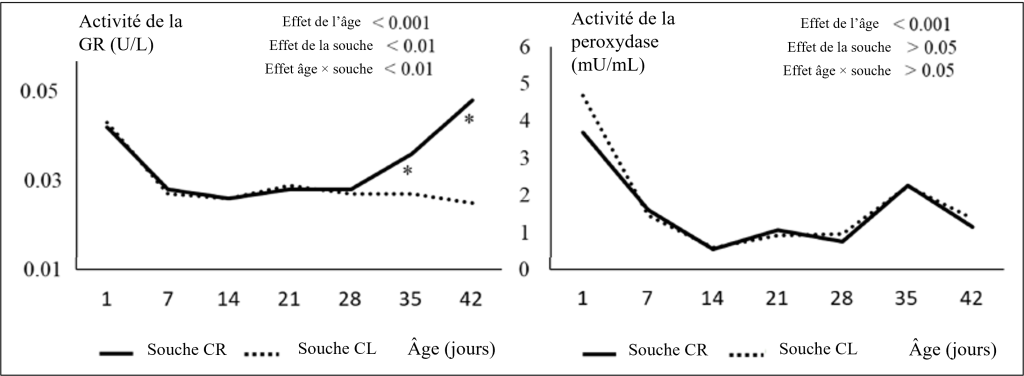
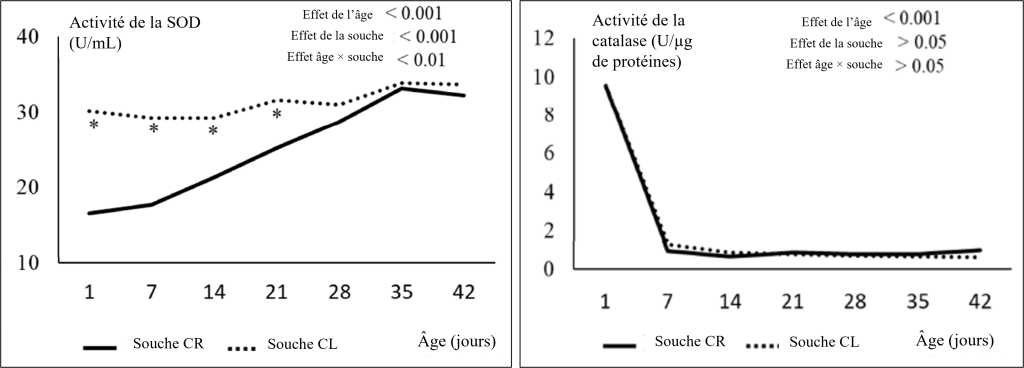
Figure 3 : Effets de l’âge et de la souche —CR = croissance rapide ; CL = croissance lente— sur l’activité des enzymes antioxydantes (GR plasmatique, peroxydase, SOD et catalase dans le muscle pectoral). Les données correspondent aux moyennes (n = 10 par souche et par âge). * Différence significative entre souches à un âge donné (p < 0,05) (Coudert et al., 2023).
1.2. Environnement et conduite d’élevage :
Les systèmes de production commerciale exposent les volailles à des facteurs de stress environnementaux et zootechniques qui augmentent la pression oxydative et sollicitent les défenses antioxydantes (Oke et al., 2024). En pratique, une densité d’élevage élevée coïncide souvent avec une mauvaise qualité de l’air et une ventilation limitée ; lorsque ces conditions sont associées à des températures ambiantes élevées, elles intensifient le stress thermique et dégradent les performances animales.
1.3. Température et vagues de chaleur :
L’augmentation des températures ambiantes et la fréquence accrue des vagues de chaleur figurent parmi les défis les plus visibles pour les performances avicoles. Ces conditions augmentent le risque de stress oxydatif en favorisant la formation de ROS et en rendant la thermorégulation plus difficile (Oke et al., 2024 ; Zaboli et al., 2019). En situation de stress thermique, les volailles augmentent leur effort respiratoire pour dissiper la chaleur, tandis que l’ingestion et l’utilisation des nutriments deviennent moins efficaces, détournant les ressources de la croissance vers les fonctions de maintien (Hu et al., 2019 ; Scanes and Dridi, 2022). En conditions terrain, ces changements se traduisent par une baisse des performances et une dégradation de l’efficacité alimentaire.
1.4. Exposition aux toxines alimentaires :
La qualité de l’aliment constitue une voie d’entrée critique du stress oxydatif, car les volailles peuvent être exposés à des mycotoxines, des ingrédients oxydés, des graisses contaminées ou des métaux. Ces contaminants peuvent augmenter la production de ROS, inhiber les défenses antioxydantes, compromettre l’intégrité tissulaire et épithéliale, et réduire la capacité d’absorption intestinale, en particulier lorsque l’exposition est prolongée ou combinée (Omar, 2013 ; Oke et al., 2024 ; Zhao et al., 2017 ; Wang et al., 2018). Globalement, la qualité de l’aliment représente donc un point de contrôle clé pour limiter le stress oxydatif, préserver la fonction de barrière intestinale et soutenir les performances animales en conditions terrain (Dahlke et al., 2015 ; Oke et al., 2024).
1.5. Micro-organismes :
La pression microbienne est un défi récurrent qui peut affecter l’intégrité intestinale, l’activation immunitaire et les performances des volailles. Lors d’une infection, le système immunitaire est activé et les cellules phagocytaires génèrent des ROS pour éliminer les pathogènes par un mécanisme de défense appelé « explosion oxydative » ; toutefois, lorsque cette réponse dépasse la capacité antioxydante, ce même mécanisme protecteur peut contribuer au stress oxydatif chez l’hôte (Kogut et al., 2020 ; Slauch, 2011). Les perturbations microbiennes peuvent amplifier la pression oxydative et le dysfonctionnement de la barrière intestinale, reliant ainsi le stress microbien à une dégradation des performances.
Ensemble, ces facteurs de stress soumettent les volailles à une pression oxydative durable, avec des conséquences cumulatives et souvent sous-estimées sur les performances, la santé et la qualité du produit.
2. Le coût sous-estimé du stress oxydatif :
2.1. Croissance, ingestion et conversion alimentaire :
En conditions terrain, le stress oxydatif se traduit d’abord par une baisse de l’ingestion, une utilisation moins efficace des nutriments et une diminution des performances de croissance. En altérant la digestion et l’absorption, et en détournant l’énergie vers la défense antioxydante et les processus de réparation, le stress oxydatif affecte directement l’efficacité alimentaire et la productivité (Oke et al., 2024).
2.2. Santé intestinale et immunité :
Le tractus gastro-intestinal est constamment exposé à des facteurs de stress alimentaires et microbiens, ce qui le rend particulièrement vulnérable au stress oxydatif. Lorsque l’équilibre oxydatif est perturbé, l’intégrité intestinale est compromise, l’absorption diminue, la sensibilité aux maladies augmente et la croissance est davantage affectée (Kim et al., 2023 ; Oke et al., 2024). Le maintien des défenses immunitaires en situation de stress oxydatif nécessite également de l’énergie qui, dans d’autres conditions, pourrait être dédiée à la croissance et aux fonctions productives (Oke et al., 2024).
2.3. Reproduction et qualité de l’œuf :
Le stress oxydatif peut compromettre les performances de reproduction, ainsi que la qualité des œufs et du sperme, en endommageant les lipides, les protéines et l’ADN des cellules et tissus reproducteurs (Oke et al., 2024). En pratique, cela peut contribuer à des coquilles plus fragiles, à des modifications de la consistance de l’albumen, à une moindre qualité du jaune et à des altérations du développement embryonnaire (Jin et al., 2022). Chez les mâles, l’excès de ROS est associé à une fragmentation de l’ADN spermatique et à une baisse de la motilité, réduisant in fine la fertilité (Khan, 2011).
2.4. Qualité de la viande :
Le stress oxydatif pendant l’élevage et la transformation favorise l’oxydation des lipides et des protéines dans le muscle, entraînant une dégradation de la couleur, de la flaveur, de la texture et de la valeur nutritionnelle de la viande. Il peut également contribuer au développement de myopathies, telles que les stries blanches (white striping) et le filet de bois (wooden breast) (Carvalho et al., 2017 ; Shakeri et al., 2018). Globalement, le stress oxydatif affecte non seulement les performances des animaux vivants, mais aussi la qualité et la valeur des produits avicoles.
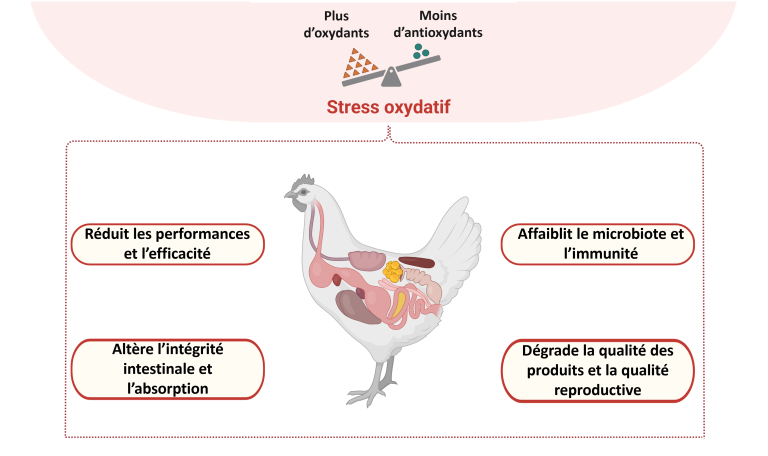
Figure 4 : Conséquences du stress oxydatif en aviculture. Créé avec BioRender.
En résumé, le stress oxydatif entraîne des coûts cumulatifs et souvent sous-estimés pour les performances, la santé et la qualité du produit. Ces coûts dépendent non seulement de l’exposition aux facteurs de stress, mais aussi de la manière dont les oiseaux régulent les défis oxydatifs et y répondent.
3. Comment les volailles répondent au stress oxydatif : des signaux oxydatifs à la défense antioxydante :
Les ROS sont naturellement produites au cours du métabolisme normal. À des niveaux contrôlés, elles agissent comme des molécules de signalisation qui aident les cellules à s’adapter aux changements métaboliques ou environnementaux. Cette réponse bénéfique et transitoire est appelée « eustress oxydatif ». Lorsque la production de ROS dépasse la capacité de détoxification de l’oiseau, cet équilibre bascule vers le « distress oxydatif ». Dans cette situation, les ROS ne soutiennent plus l’adaptation ; elles contribuent au contraire aux dommages cellulaires, au dysfonctionnement tissulaire et à la baisse des performances (Gessner et al., 2016 ; Surai et al., 2019 ; Oke et al., 2024) (Figure 5).
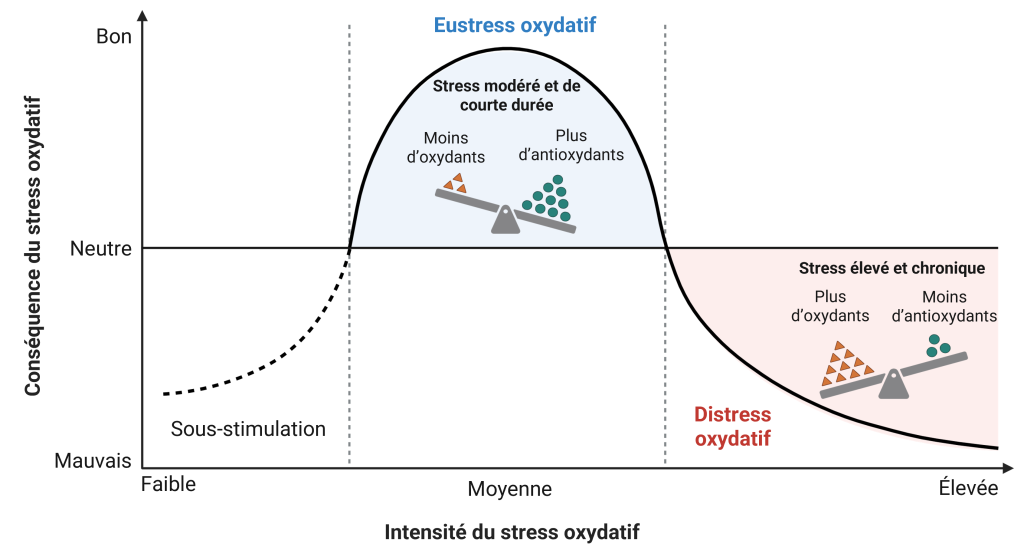
Figure 5 : Relation entre l’équilibre oxydant-antioxydant et les conséquences du stress oxydatif. Créé avec BioRender.
Pour maintenir cet équilibre, les oiseaux s’appuient sur un réseau antioxydant coordonné, composé de défenses enzymatiques et non enzymatiques. En pratique, ce système remplit quatre fonctions essentielles : limiter la formation de ROS, neutraliser les oxydants, interrompre les réactions oxydatives en chaîne et réparer ou éliminer les composants cellulaires endommagés (Figure 6) (Panda and Cherian, 2014 ; Surai et al., 2019).
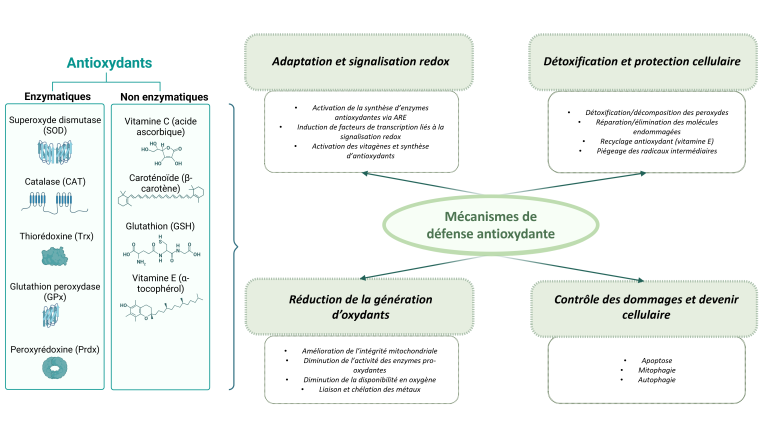
Figure 6 : Mécanismes de défense antioxydante. Adapté de Surai et al., 2019. Créé avec BioRender
Même avec un système antioxydant efficace, les facteurs de stress présents en conditions commerciales peuvent dépasser la capacité d’adaptation de l’oiseau. C’est à ce niveau que les stratégies nutritionnelles et de conduite d’élevage deviennent importantes pour soutenir la protection antioxydante, l’adaptation et la réparation.
4. Nutrition ciblée pour le contrôle du stress oxydatif :
En situation de stress, l’objectif n’est pas de remplacer les défenses antioxydantes endogènes de l’oiseau, mais de les maintenir actives et capables de s’adapter à une pression oxydative accrue. Des leviers nutritionnels comme la vitamine E, le sélénium, la méthionine et les composés d’origine végétale peuvent contribuer à soutenir cette capacité d’adaptation. Parmi eux, les polyphénols présentent un intérêt particulier, car ils peuvent contribuer non seulement à limiter les dommages oxydatifs, mais aussi à soutenir l’adaptation antioxydante et la résilience (Lipiński et al., 2017). Les polyphénols sont des métabolites secondaires des plantes présents dans les céréales, les fruits, le thé et de nombreux extraits botaniques. Ils sont reconnus pour leurs effets antioxydants, même si les mécanismes impliqués et la contribution relative des voies directes font encore l’objet d’études. Toutefois, les polyphénols suscitent un intérêt croissant, car ils peuvent soutenir les défenses antioxydantes endogènes, moduler des voies inflammatoires comme Nrf2 et NF‑κB (Surai, 2020), et interagir avec le microbiote intestinal. Par exemple, la farine fermentée de feuilles de Ginkgo biloba a augmenté l’expression intestinale de Nrf2 chez le poulet, un régulateur clé des défenses antioxydantes (Y. Niu et al., 2019). À travers ces actions combinées, les polyphénols contribuent à maintenir l’équilibre oxydatif, l’intégrité intestinale et la résilience globale des volailles.
5. Une solution nutritionnelle fonctionnelle combinant soutien prébiotique et antioxydant :
5.1. CalseaGrow : conçu pour répondre à des défis commerciaux persistants
5.2. Soutenir le statut antioxydant et la qualité de l’œuf en fin de cycle de ponte
Un essai réalisé chez des poules pondeuses en fin de production a montré que la supplémentation en CalseaGrow améliorait à la fois les réserves antioxydantes systémiques et la qualité interne de l’œuf en fin de cycle de ponte.
Dans cette étude, 574 poules, âgées de 68 à 79 semaines, ont reçu soit un aliment témoin, soit CalseaGrow à 1 kg/t pendant une période de 10 semaines. Entre 74 et 78 semaines, le statut antioxydant a été évalué à l’aide du test RESEDA, qui mesure l’efficacité des défenses antiradicalaires circulantes d’un échantillon sanguin et permet de libérer les différentes réserves d’antioxydants contenues dans les cellules. Au cours de ce test, les antioxydants stockés sont libérés par l’ajout de différentes enzymes : glucosidase pour les réserves R1, sulfatase pour les réserves R2 et glucuronidase pour les réserves R3. Des paramètres de qualité de l’œuf, tels que la rigidité de la membrane vitelline, ont également été évalués vers la fin de l’essai.
La supplémentation en CalseaGrow a augmenté la réserve antioxydante, comme l’indique un temps de demi-hémolyse (T1/2) plus élevé dans les fractions de réserve R1 et R3, traduisant une meilleure résistance aux dommages oxydatifs (Figure 7). Cette amélioration du statut antioxydant a été associée à des améliorations mesurables de la qualité interne de l’œuf.
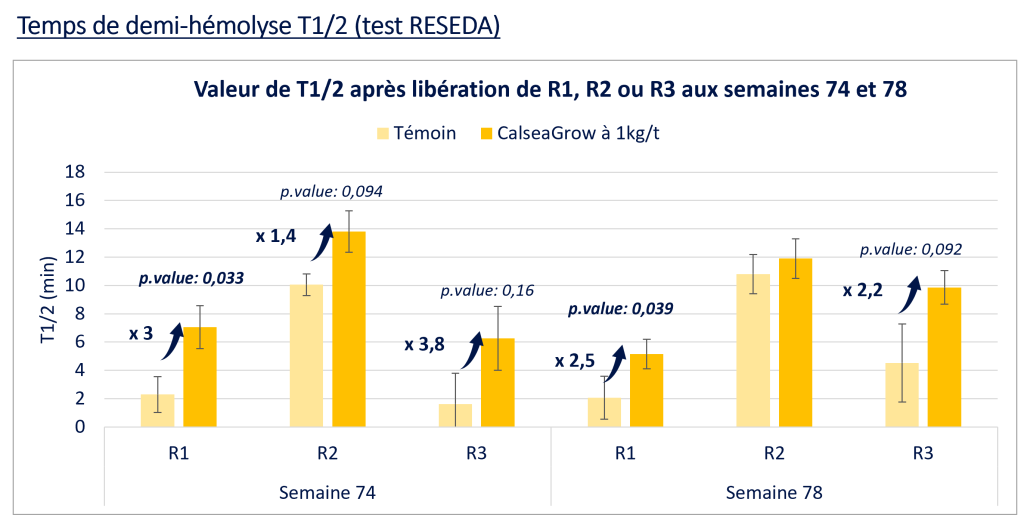
Figure 7 : Effet de CalseaGrow sur les réserves antioxydantes chez les poules pondeuses, évalué par le test RESEDA. Un temps de demi-hémolyse (T1/2) plus élevé indique une meilleure résistance à l’oxydation. CalseaGrow (1 kg/t) a augmenté les valeurs de T1/2, principalement dans les fractions de réserve R1 et R3. Le test RESEDA est une méthode brevetée développée par le Dr Michel Prost (2013).
En situation de stress oxydatif, les radicaux libres peuvent provoquer des dommages cellulaires, notamment la peroxydation des lipides et l’oxydation des protéines. La membrane vitelline, composée de lipides, fait partie des paramètres essentiels liés à la qualité de l’œuf et au développement embryonnaire. CalseaGrow a montré une amélioration significative de la rigidité de la membrane, avec une augmentation de 2,4 % à la semaine 78 (Figure 8).
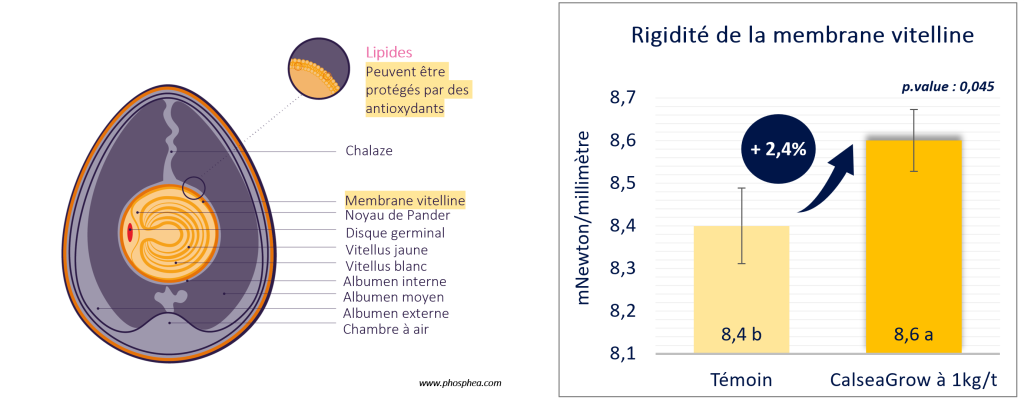
Figure 8 : Effet de CalseaGrow sur la rigidité de la membrane vitelline. La supplémentation en CalseaGrow (1 kg/t) a significativement augmenté la rigidité de la membrane vitelline, suggérant une meilleure protection des structures de l’œuf riches en lipides contre le stress oxydatif.
Dans l’ensemble, ces résultats indiquent que l’incorporation de CalseaGrow dans l’aliment soutient la capacité antioxydante et contribue à préserver la structure et la qualité de l’œuf pendant les dernières phases du cycle de ponte, lorsque la pression oxydative et la vulnérabilité liée à l’âge sont plus élevées.
📚 Références bibliographiques :
Boveris, A., & Chance, B. (1973). The mitochondrial generation of hydrogen peroxide: General properties and effect of hyperbaric oxygen. Biochemical Journal, 134(3), 707–716.
Carvalho, R., Shimokomaki, M., & Estévez, M. (2017). Poultry meat color and oxidation. In Poultry Quality Evaluation (pp. 133–157). Woodhead Publishing.
Cassuce, D. C., Tinôco, I. D. F., Baêta, F. C., Zolnier, S., Cecon, P. R., & Vieira, M. D. F. (2013). Thermal comfort temperature update for broiler chickens up to 21 days of age. Engenharia Agrícola, 33, 28–36.
Chance, B., Sies, H., & Boveris, A. (1979). Hydroperoxide metabolism in mammalian organs. Physiological Reviews, 59(3), 527–605.
Chen, Z., Xing, T., Li, J., Zhang, L., Jiang, Y., & Gao, F. (2022). Oxidative stress impairs meat quality of broilers by damaging mitochondrial function, affecting calcium metabolism and leading to ferroptosis. Animal Bioscience, 35(10), 1616–1627.
Coudert, E., Baéza, E., Chartrin, P., Jimenez, J., Cailleau-Audouin, E., Bordeau, T., & Berri, C. (2023). Slow and Fast-Growing Chickens Use Different Antioxidant Pathways to Maintain Their Redox Balance during Postnatal Growth. Animals, 13(7), 1160.
Dahlke, F., Gonzales, E., Gadelha, A. C., Maiorka, A., Borges, S. A., & Rosa, A. P. (2015). Development of the digestive tract of broilers fed diets containing different types of fiber. Revista Brasileira de Ciência Avícola, 17(1), 43–50.
Das, K., & Roychoudhury, A. (2014). Reactive oxygen species (ROS) and response of antioxidants as ROS-scavengers during environmental stress in plants. Frontiers in Environmental Science, 2, 53.
Estévez, M. (2015). Oxidative damage to poultry: From farm to fork. Poultry Science, 94(6), 1368–1378.
Geraert, P. A., Padilha, J. C. F., & Guillaumin, S. (1996). Metabolic and endocrine changes induced by chronic heat exposure in broiler chickens: Growth performance, body composition and energy retention. British Journal of Nutrition, 75(2), 195–204.
Gessner, D. K., Ringseis, R., & Eder, K. (2016). Potential of plant polyphenols to combat oxidative stress and inflammatory processes in farm animals. Journal of Animal Physiology and Animal Nutrition, 101(3), 605–628.
Hu, R., He, Y., Arowolo, M. A., Wu, S., & He, J. (2019). Polyphenols as potential attenuators of heat stress in poultry production. Antioxidants, 8(3), 67.
Jin, J., Zhou, Q., Lan, F., Li, J., Yang, N., & Sun, C. (2022). Microbial composition of egg components and its association with hatchability of laying hens. Frontiers in Microbiology, 13, 943097.
Khan, R. U. (2011). Antioxidants and poultry semen quality. World’s Poultry Science Journal, 67(2), 297–308.
Kim, H. W., Lee, S., Hur, S., Kil, D. Y., & Kim, J. H. (2023). Effects of functional nutrients on chicken intestinal epithelial cells induced with oxidative stress. Journal of Animal Science and Technology, 65, e22.
Kogut, M. H., Lee, A., & Santin, E. (2020). Microbiome and pathogen interaction with the immune system. Poultry Science, 99(4), 1906–1913.
Lipiński, K., Mazur‑Kuśnirek, M., Antoszkiewicz, Z., & Purwin, C. (2017). Polyphenols in monogastric nutrition – A review. Annals of Animal Science, 17(1), 41–58.
Oke, O. E., Akosile, O. A., Oni, A. I., et al. (2024). Oxidative stress in poultry production. Poultry Science, 103, 104003.
Omar, H. (2013). Mycotoxins-induced oxidative stress and disease. In Mycotoxins and Their Implications in Food Safety. InTechOpen.
Panda, A. K., & Cherian, G. (2014). Role of vitamin E in counteracting oxidative stress in poultry. The Journal of Poultry Science, 51(2), 109–117.
Scanes, C. G., & Dridi, S. (Eds.). (2022). Sturkie's Avian Physiology (7th ed.). Academic Press.
Schothorst Feed Research (SFR). (2024). Applied poultry nutrition: Minerals [Seminar presentation].
Shakeri, M., Cottrell, J. J., Wilkinson, S., et al. (2018). Betaine and antioxidants improve growth performance, breast muscle development and ameliorate thermoregulatory responses to cyclic heat exposure in broiler chickens. Animals, 8(10), 162.
Slauch, J. M. (2011). How does the oxidative burst of macrophages kill bacteria? Still an open question. Molecular Microbiology, 80(3), 580–583.
Surai, P. F., Kochish, I. I., Fisinin, V. I., & Kidd, M. T. (2019). Antioxidant defence systems and oxidative stress in poultry biology: An update. Antioxidants, 8(7), 235.
Surai, P. F. (2020). Antioxidant systems in poultry biology: Heat stress, vitagenes and performance. Wageningen Academic Publishers.
Wang, Y., Zhao, H., Liu, J., et al. (2018). Copper- and arsenic-induced oxidative stress and immune imbalance are associated with activation of heat shock proteins in chicken intestines. International Immunopharmacology, 60, 64–75.
Niu, Y., Zhang, J. F., Wan, X. L., et al. (2019). Effect of fermented Ginkgo biloba leaves on nutrient utilisation, intestinal digestive function and antioxidant capacity in broilers. British Poultry Science, 60(1), 47–55.
Zaboli, G., Huang, X., Feng, X., & Ahn, D. U. (2019). How can heat stress affect chicken meat quality? A review. Poultry Science, 98(3), 1551–1556.
Zhao, H., He, Y., Li, S., et al. (2017). Subchronic arsenism-induced oxidative stress and inflammation contribute to apoptosis through mitochondrial- and death receptor-dependent pathways in chicken immune organs. Oncotarget, 8(25), 40327–40344.
Zulkifli, I., Al‑Aqil, A., Omar, A. R., Sazili, A. Q., & Rajion, M. A. (2011). Crating and heat stress influence blood parameters and heat shock protein 70 expression in broiler chickens showing different resistance to heat stress. Poultry Science, 90(9), 2045–2050.