Las líneas avícolas modernas han sido seleccionadas para lograr un crecimiento rápido, una mejor conversión alimenticia y una alta productividad (Zulkifli et al., 2011). Si bien este progreso genético ha mejorado el rendimiento, también ha incrementado la producción de calor metabólico y reducido la termotolerancia (Figura 1). A medida que la temperatura ambiente supera el rango de termoneutralidad, las aves experimentan alteraciones fisiológicas y metabólicas, como una menor ingesta de alimento, una redistribución de la energía y cambios en la utilización de nutrientes, lo que las predispone al estrés oxidativo (Geraert et al., 1996; Cassuce et al., 2013; Scanes and Dridi, 2022). El estrés oxidativo se define como un desequilibrio en favor de las especies reactivas de oxígeno (ROS) frente a las defensas antioxidantes, lo que finalmente puede contribuir a pérdidas en crecimiento y eficiencia.
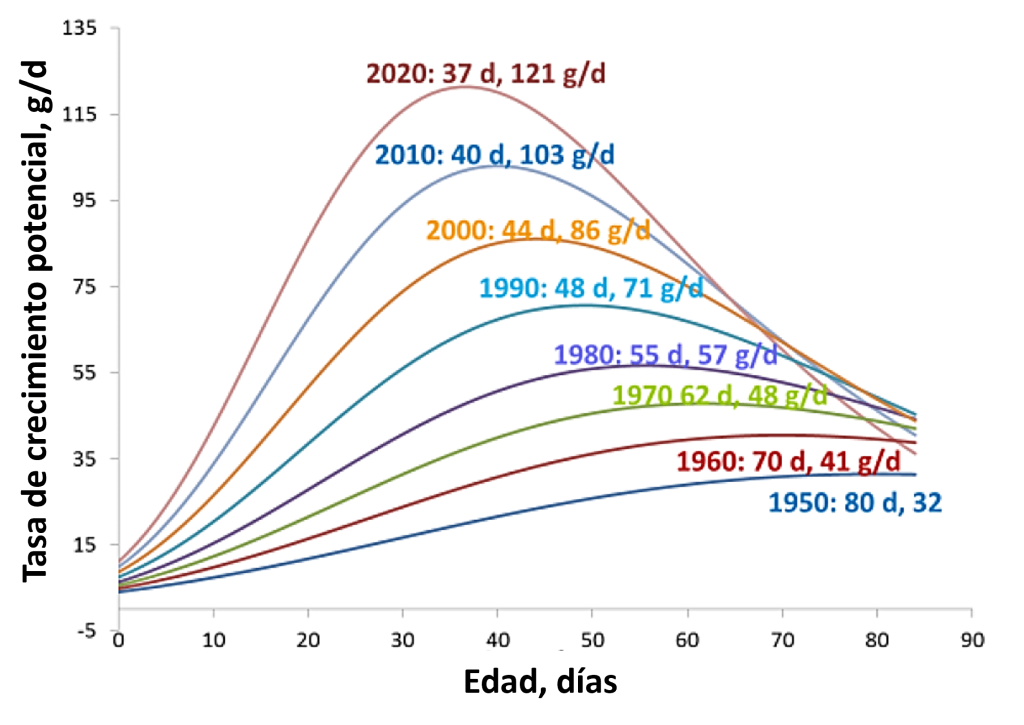
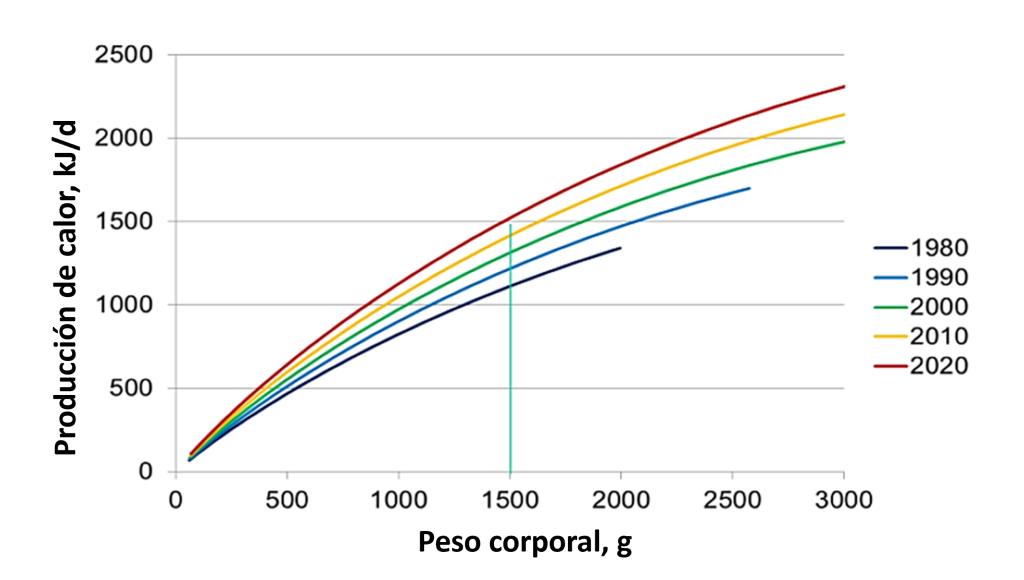
Figura 1: El progreso genético en pollos de engorde ha aumentado la tasa de crecimiento junto con la producción de calor metabólico. Tasa de crecimiento estimada (arriba) y producción de calor en relación con el peso corporal (abajo) a lo largo de las décadas. Adaptado de Schothorst Feed Research, 2024.
En las condiciones actuales de producción, el estrés oxidativo rara vez se origina a partir de un único factor. Más bien, surge de la convergencia de múltiples desafíos ambientales, nutricionales, de manejo y biológicos que suelen presentarse de forma simultánea (Figura 2).
1. Principales factores que favorecen el estrés oxidativo en la producción avícola:
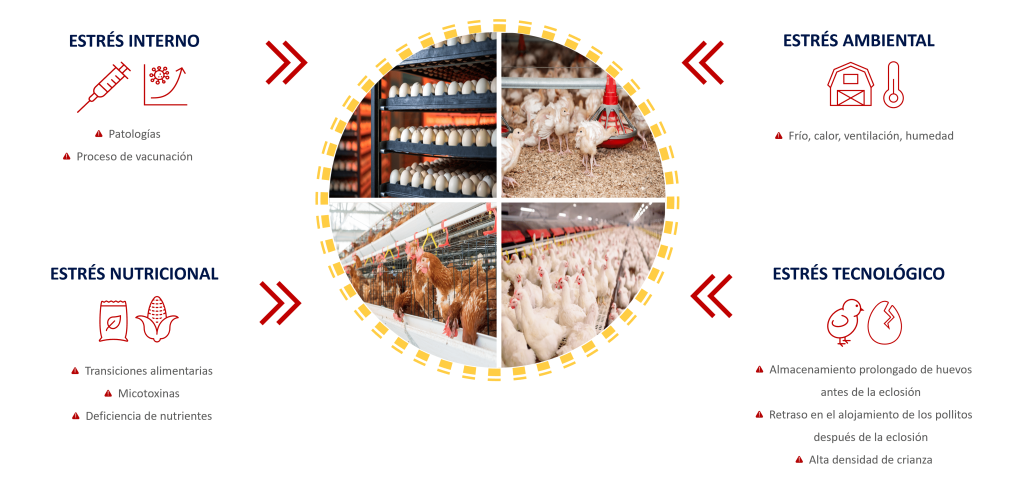
Figura 2: Principales factores de estrés en la producción avícola. Adaptado de Surai et al., 2019.
1.1. Matices asociados a la línea genética y la edad:
Los pollos de engorde de crecimiento rápido son más susceptibles al estrés oxidativo que las líneas de crecimiento más lento, lo que refleja diferencias en la forma en que las defensas antioxidantes se adaptan durante el desarrollo. En particular, los pollos de crecimiento rápido parecen depender en mayor medida de la glutatión reductasa (GR), un marcador del reciclaje antioxidante, mientras que los pollos de crecimiento lento mantienen una actividad más estable de la superóxido dismutasa (SOD), lo que sugiere una mayor capacidad para sostener la primera línea de defensa antioxidante en los distintos tejidos (Figura 3).
Las primeras etapas de vida también se caracterizan por cambios rápidos en la protección antioxidante: algunas defensas, como las peroxidasas y la GR, disminuyen poco después de la eclosión; la catalasa (CAT) alcanza un pico temprano y luego desciende, mientras que la SOD adquiere progresivamente mayor importancia con la edad (Figura 3) (Coudert et al., 2023).
Estas adaptaciones ayudan a explicar por qué la susceptibilidad al estrés oxidativo —y su costo biológico— varía según la línea genética y la edad, lo que subraya la importancia de considerar tanto el origen genético como la etapa de desarrollo en condiciones comerciales.
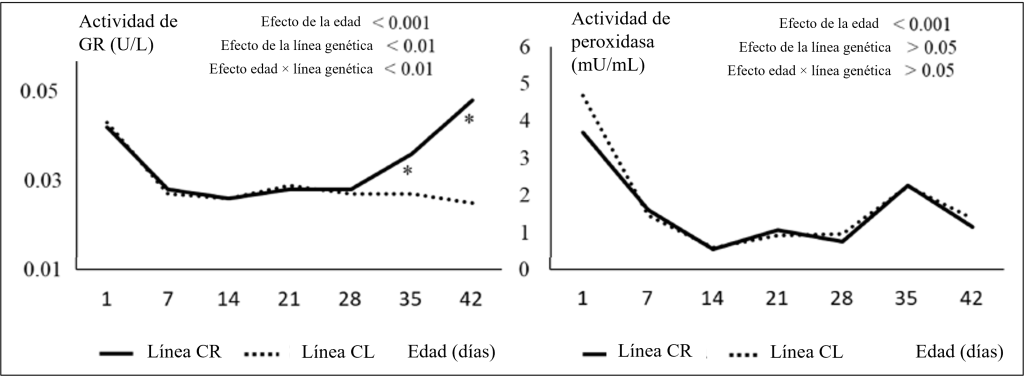
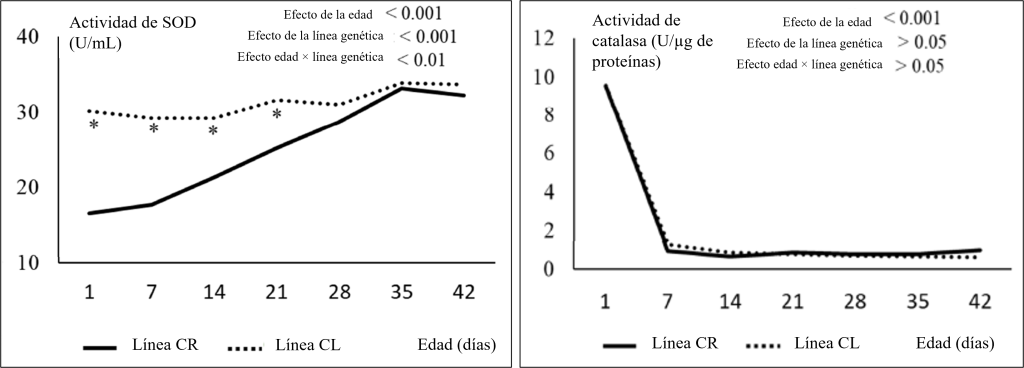
Figura 3: Efectos de la edad y la línea genética —CR = crecimiento rápido; CL = crecimiento lento— sobre la actividad de enzimas antioxidantes (GR plasmática, peroxidasa, SOD y catalasa en músculo pectoral). Los datos corresponden a medias (n = 10 por línea genética y edad). * Diferencia significativa entre líneas genéticas a una edad determinada (p < 0.05) (Coudert et al., 2023).
1.2. Ambiente y manejo:
Los sistemas de producción comercial exponen a las aves a factores de estrés ambientales y de manejo que aumentan la presión oxidativa y desafían las defensas antioxidantes (Oke et al., 2024). En la práctica, una alta densidad de alojamiento suele coincidir con una mala calidad del aire y una ventilación limitada; cuando estas condiciones se combinan con temperaturas ambientales elevadas, intensifican el estrés por calor y deterioran el rendimiento animal.
1.3. Temperatura y olas de calor:
El aumento de la temperatura ambiente y la mayor frecuencia de olas de calor se encuentran entre los desafíos más visibles para el rendimiento avícola. Estas condiciones incrementan el riesgo de estrés oxidativo al favorecer la formación de ROS y dificultar la termorregulación (Oke et al., 2024; Zaboli et al., 2019). Bajo estrés por calor, las aves aumentan el esfuerzo respiratorio para disipar calor, mientras que la ingesta de alimento y la utilización de nutrientes se vuelven menos eficientes, desviando recursos desde el crecimiento hacia funciones de mantenimiento (Hu et al., 2019; Scanes and Dridi, 2022). En condiciones de campo, estos cambios se traducen en un menor rendimiento y una menor eficiencia alimenticia.
1.4. Exposición a toxinas dietarias:
La calidad del alimento es una vía crítica de entrada para el estrés oxidativo, ya que las aves pueden estar expuestas a micotoxinas, ingredientes oxidados, grasas contaminadas o metales. Estos contaminantes pueden aumentar la producción de ROS, inhibir las defensas antioxidantes, comprometer la integridad tisular y epitelial, y reducir la capacidad de absorción intestinal, especialmente cuando la exposición es prolongada o combinada (Omar, 2013; Oke et al., 2024; Zhao et al., 2017; Wang et al., 2018). En conjunto, la calidad del alimento representa un punto de control clave para limitar el estrés oxidativo, preservar la función de barrera intestinal y sostener el rendimiento animal en condiciones de campo (Dahlke et al., 2015; Oke et al., 2024).
1.5. Microorganismos:
La presión microbiana es un desafío recurrente que puede afectar la integridad intestinal, la activación inmunitaria y el rendimiento de las aves. Durante una infección, el sistema inmunitario se activa y las células fagocíticas generan ROS para eliminar patógenos mediante un mecanismo de defensa conocido como “estallido oxidativo”; sin embargo, cuando esta respuesta supera la capacidad antioxidante, el mismo mecanismo protector puede contribuir al estrés oxidativo en el huésped (Kogut et al., 2020; Slauch, 2011). Las alteraciones microbianas pueden amplificar la presión oxidativa y la disfunción de la barrera intestinal, vinculando el estrés microbiano con un deterioro del rendimiento.
En conjunto, estos factores de estrés someten a las aves a una presión oxidativa sostenida, con consecuencias acumulativas y a menudo subestimadas sobre el rendimiento, la salud y la calidad del producto.
2. El costo subestimado del estrés oxidativo:
2.1. Crecimiento, consumo de alimento y conversión alimenticia:
En condiciones de campo, el estrés oxidativo se manifiesta primero a través de un menor consumo de alimento, una utilización menos eficiente de los nutrientes y un menor rendimiento de crecimiento. Al afectar la digestión y la absorción, y al desviar energía hacia la defensa antioxidante y los procesos de reparación, el estrés oxidativo impacta directamente la eficiencia alimenticia y la productividad (Oke et al., 2024).
2.2. Salud intestinal e inmunidad:
El tracto gastrointestinal está constantemente expuesto a factores de estrés dietarios y microbianos, lo que lo hace particularmente vulnerable al estrés oxidativo. Cuando se altera el equilibrio oxidativo, se compromete la integridad intestinal, disminuye la absorción, aumenta la susceptibilidad a enfermedades y se afecta aún más el crecimiento (Kim et al., 2023; Oke et al., 2024). Mantener las defensas inmunitarias bajo estrés oxidativo también requiere energía que, en otras condiciones, podría destinarse al crecimiento y a las funciones productivas (Oke et al., 2024).
2.3. Reproducción y calidad de huevo:
El estrés oxidativo puede comprometer el rendimiento reproductivo, así como la calidad del huevo y del semen, al dañar lípidos, proteínas y ADN en células y tejidos reproductivos (Oke et al., 2024). En la práctica, esto puede contribuir a cáscaras más frágiles, cambios en la consistencia del albumen, menor calidad de la yema y alteraciones en el desarrollo embrionario (Jin et al., 2022). En machos, el exceso de ROS se asocia con fragmentación del ADN espermático y menor motilidad, lo que finalmente reduce la fertilidad (Khan, 2011).
2.4. Calidad de la carne:
El estrés oxidativo durante la crianza y el procesamiento favorece la oxidación de lípidos y proteínas en el músculo, lo que deteriora el color, el sabor, la textura y el valor nutricional de la carne. También puede contribuir al desarrollo de miopatías, como estriación blanca (white striping) y pechuga de madera (wooden breast) (Carvalho et al., 2017; Shakeri et al., 2018). En conjunto, el estrés oxidativo no solo afecta el rendimiento en vivo, sino también la calidad y el valor de los productos avícolas.
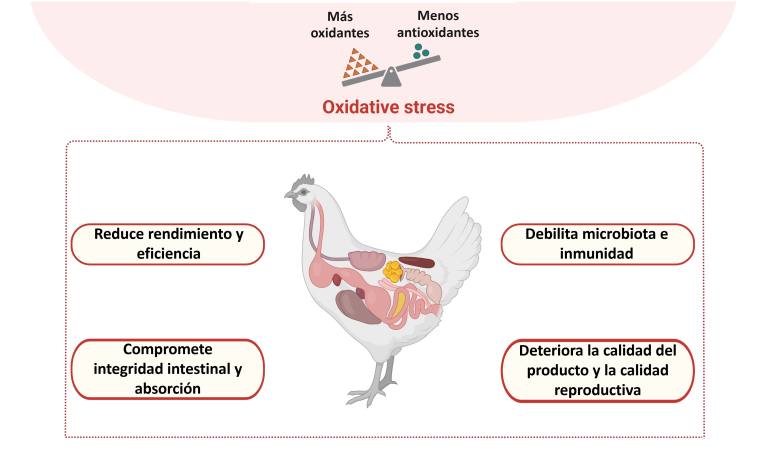
Figura 4: Consecuencias del estrés oxidativo en avicultura. Creado en BioRender.
En resumen, el estrés oxidativo implica costos acumulativos y a menudo subestimados para el rendimiento, la salud y la calidad del producto, que dependen no solo de la exposición a factores de estrés, sino también de la forma en que las aves regulan y responden a los desafíos oxidativos.
3. Cómo responden las aves al estrés oxidativo: de las señales oxidativas a la defensa antioxidante:
Las ROS se producen naturalmente durante el metabolismo normal. En niveles controlados, actúan como moléculas de señalización que ayudan a las células a adaptarse a cambios metabólicos o ambientales. Esta respuesta beneficiosa y transitoria se conoce como “eustrés oxidativo”. Cuando la producción de ROS supera la capacidad de detoxificación del ave, este equilibrio se desplaza hacia el “distrés oxidativo”. En esta situación, las ROS dejan de apoyar la adaptación y, en cambio, contribuyen al daño celular, la disfunción tisular y el deterioro del rendimiento (Gessner et al., 2016; Surai et al., 2019; Oke et al., 2024) (Figura 5).
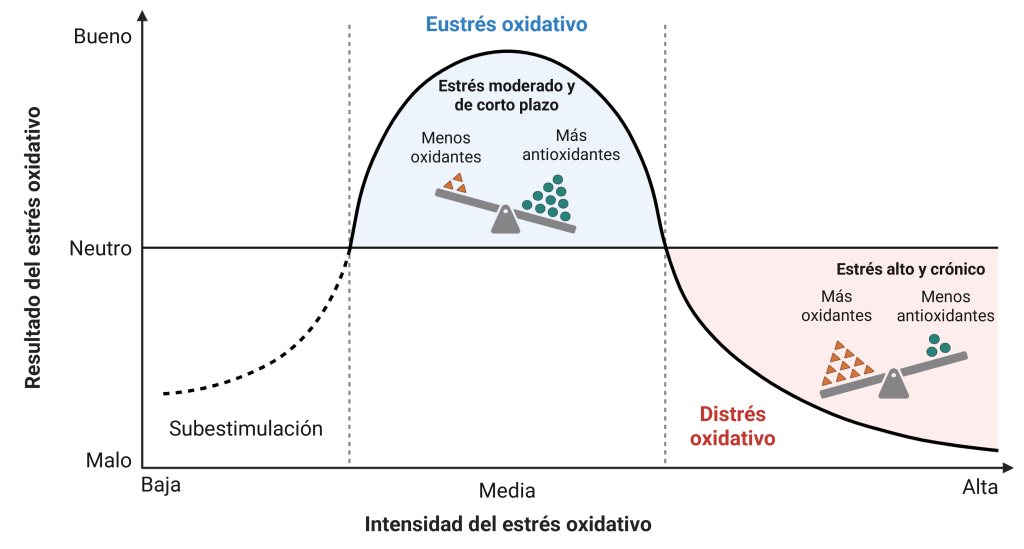
Figura 5: Relación entre el equilibrio oxidante-antioxidante y las consecuencias del estrés oxidativo. Creado en BioRender.
Para mantener este equilibrio, las aves dependen de una red antioxidante coordinada, compuesta por defensas enzimáticas y no enzimáticas. En la práctica, este sistema cumple cuatro funciones esenciales: limita la formación de ROS, neutraliza oxidantes, interrumpe reacciones oxidativas en cadena y repara o elimina componentes celulares dañados (Figura 6) (Panda and Cherian, 2014; Surai et al., 2019).
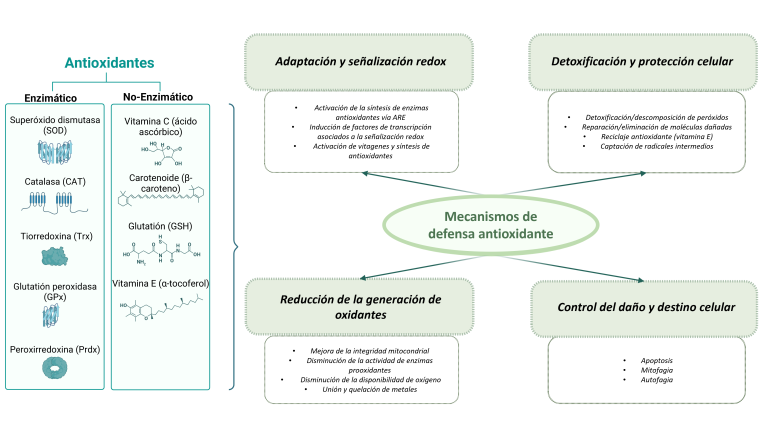
Figura 6: Mecanismos de defensa antioxidante. Adaptado de Surai et al., 2019. Creado en BioRender.
Incluso con un sistema antioxidante eficaz, los factores de estrés presentes en condiciones comerciales pueden superar la capacidad de adaptación del ave. En este punto, las estrategias nutricionales y de manejo se vuelven importantes para apoyar la protección antioxidante, la adaptación y la reparación.
4. Nutrición dirigida para el control del estrés oxidativo:
En condiciones de estrés, el objetivo no es reemplazar las defensas antioxidantes endógenas del ave, sino mantenerlas activas y capaces de adaptarse a una mayor presión oxidativa. Herramientas nutricionales como la vitamina E, el selenio, la metionina y los compuestos de origen vegetal pueden contribuir a sostener esta capacidad de adaptación. Entre ellos, los polifenoles son de particular interés, ya que pueden contribuir no solo a limitar el daño oxidativo, sino también a apoyar la adaptación antioxidante y la resiliencia (Lipiński et al., 2017). Los polifenoles son metabolitos secundarios de las plantas presentes en granos, frutas, té y numerosos extractos botánicos. Son reconocidos por sus efectos antioxidantes, aunque los mecanismos implicados y la contribución relativa de las vías directas siguen siendo objeto de estudio. No obstante, los polifenoles despiertan un interés creciente porque pueden apoyar las defensas antioxidantes endógenas, modular vías inflamatorias como Nrf2 y NF‑κB (Surai, 2020), e interactuar con la microbiota intestinal. Por ejemplo, la harina fermentada de hojas de Ginkgo biloba aumentó la expresión intestinal de Nrf2 en pollos, un regulador clave de las defensas antioxidantes (Y. Niu et al., 2019). A través de estas acciones combinadas, los polifenoles ayudan a mantener el equilibrio oxidativo, la integridad intestinal y la resiliencia general de las aves.
5. Una solución nutricional funcional que combina apoyo prebiótico y antioxidante:
5.1. CalseaGrow: diseñado para responder a desafíos comerciales persistentes
A lo largo del ciclo de producción, las aves están expuestas a múltiples fuentes de estrés (Figura 2) y, por lo tanto, dependen de reservas antioxidantes adecuadas para mantener el equilibrio fisiológico. En este contexto, el manejo del lote y la nutrición dirigida desempeñan un papel clave para apoyar la salud y el rendimiento.
Dentro de este enfoque, Phosphea ha desarrollado CalseaGrow, una materia prima funcional para especies monogástricas que combina apoyo prebiótico y antioxidante. A base de extracto cítrico y algas calcificadas, CalseaGrow está diseñado para contribuir a la reserva antioxidante, apoyar la función intestinal, la absorción de nutrientes y la utilización de minerales. Su forma microgranulada permite una incorporación homogénea a 1 kg/t, lo que lo hace adecuado tanto para sistemas de producción convencionales como orgánicos.
5.2. Apoyo al estado antioxidante y a la calidad del huevo al final del ciclo de postura
Un ensayo realizado en gallinas ponedoras durante la etapa final de producción mostró que la suplementación con CalseaGrow mejoró tanto las reservas antioxidantes sistémicas como la calidad interna del huevo al final del ciclo de postura.
En este estudio, 574 gallinas, de 68 a 79 semanas de edad, recibieron una dieta control o CalseaGrow a 1 kg/t durante un período de 10 semanas. Entre las semanas 74 y 78, el estado antioxidante se evaluó mediante la prueba RESEDA, que mide la eficacia de las defensas antirradicales circulantes en una muestra de sangre y permite liberar las diferentes reservas de antioxidantes contenidas en las células. Durante esta prueba, los antioxidantes almacenados se liberan mediante la adición de diferentes enzimas: glucosidasa para las reservas R1, sulfatasa para las reservas R2 y glucuronidasa para las reservas R3. También se evaluaron parámetros de calidad del huevo, como la rigidez de la membrana vitelina, hacia el final del ensayo.
La suplementación con CalseaGrow aumentó la reserva antioxidante, reflejada por un mayor tiempo de hemólisis media (T1/2) en las fracciones de reserva R1 y R3, lo que indica una mejor resistencia al daño oxidativo (Figura 7). Esta mejora del estado antioxidante se asoció con mejoras medibles en la calidad interna del huevo.
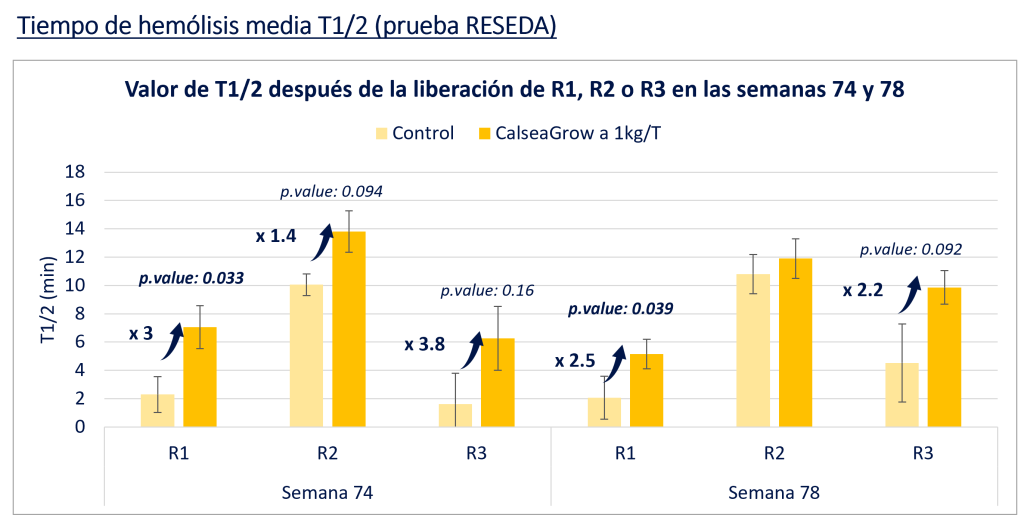
Figura 7: Efecto de CalseaGrow sobre las reservas antioxidantes en gallinas ponedoras, evaluado mediante la prueba RESEDA. Un mayor tiempo de semihemólisis (T1/2) indica una mejor resistencia a la oxidación. CalseaGrow (1 kg/t) aumentó los valores de T1/2, principalmente en las fracciones de reserva R1 y R3. La prueba RESEDA es un método patentado desarrollado por el Dr. Michel Prost (2013).
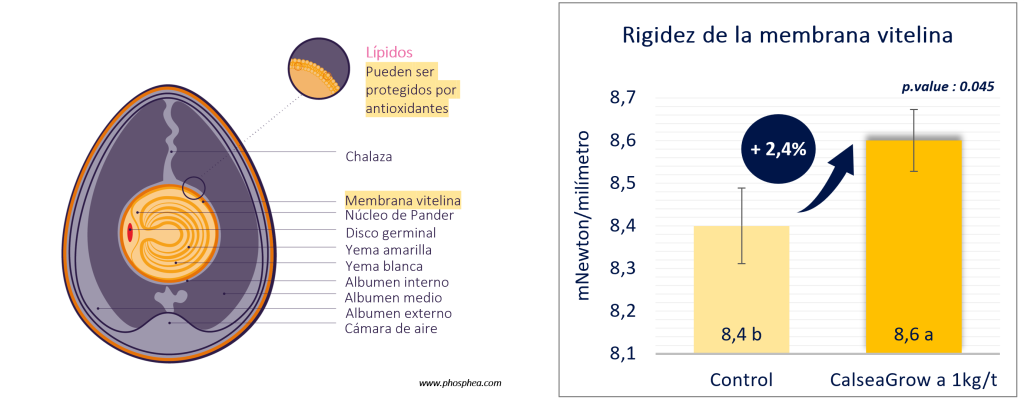
Figura 8: Efecto de CalseaGrow sobre la rigidez de la membrana vitelina. La suplementación con CalseaGrow (1 kg/t) aumentó significativamente la rigidez de la membrana vitelina, lo que sugiere una mayor protección de las estructuras del huevo ricas en lípidos frente al estrés oxidativo.
📚 Referencias bibliográficas:
Boveris, A., & Chance, B. (1973). The mitochondrial generation of hydrogen peroxide: General properties and effect of hyperbaric oxygen. Biochemical Journal, 134(3), 707–716.
Carvalho, R., Shimokomaki, M., & Estévez, M. (2017). Poultry meat color and oxidation. In Poultry Quality Evaluation (pp. 133–157). Woodhead Publishing.
Cassuce, D. C., Tinôco, I. D. F., Baêta, F. C., Zolnier, S., Cecon, P. R., & Vieira, M. D. F. (2013). Thermal comfort temperature update for broiler chickens up to 21 days of age. Engenharia Agrícola, 33, 28–36.
Chance, B., Sies, H., & Boveris, A. (1979). Hydroperoxide metabolism in mammalian organs. Physiological Reviews, 59(3), 527–605.
Chen, Z., Xing, T., Li, J., Zhang, L., Jiang, Y., & Gao, F. (2022). Oxidative stress impairs meat quality of broilers by damaging mitochondrial function, affecting calcium metabolism and leading to ferroptosis. Animal Bioscience, 35(10), 1616–1627.
Coudert, E., Baéza, E., Chartrin, P., Jimenez, J., Cailleau-Audouin, E., Bordeau, T., & Berri, C. (2023). Slow and Fast-Growing Chickens Use Different Antioxidant Pathways to Maintain Their Redox Balance during Postnatal Growth. Animals, 13(7), 1160.
Dahlke, F., Gonzales, E., Gadelha, A. C., Maiorka, A., Borges, S. A., & Rosa, A. P. (2015). Development of the digestive tract of broilers fed diets containing different types of fiber. Revista Brasileira de Ciência Avícola, 17(1), 43–50.
Das, K., & Roychoudhury, A. (2014). Reactive oxygen species (ROS) and response of antioxidants as ROS-scavengers during environmental stress in plants. Frontiers in Environmental Science, 2, 53.
Estévez, M. (2015). Oxidative damage to poultry: From farm to fork. Poultry Science, 94(6), 1368–1378.
Geraert, P. A., Padilha, J. C. F., & Guillaumin, S. (1996). Metabolic and endocrine changes induced by chronic heat exposure in broiler chickens: Growth performance, body composition and energy retention. British Journal of Nutrition, 75(2), 195–204.
Gessner, D. K., Ringseis, R., & Eder, K. (2016). Potential of plant polyphenols to combat oxidative stress and inflammatory processes in farm animals. Journal of Animal Physiology and Animal Nutrition, 101(3), 605–628.
Hu, R., He, Y., Arowolo, M. A., Wu, S., & He, J. (2019). Polyphenols as potential attenuators of heat stress in poultry production. Antioxidants, 8(3), 67.
Jin, J., Zhou, Q., Lan, F., Li, J., Yang, N., & Sun, C. (2022). Microbial composition of egg components and its association with hatchability of laying hens. Frontiers in Microbiology, 13, 943097.
Khan, R. U. (2011). Antioxidants and poultry semen quality. World’s Poultry Science Journal, 67(2), 297–308.
Kim, H. W., Lee, S., Hur, S., Kil, D. Y., & Kim, J. H. (2023). Effects of functional nutrients on chicken intestinal epithelial cells induced with oxidative stress. Journal of Animal Science and Technology, 65, e22.
Kogut, M. H., Lee, A., & Santin, E. (2020). Microbiome and pathogen interaction with the immune system. Poultry Science, 99(4), 1906–1913.
Lipiński, K., Mazur‑Kuśnirek, M., Antoszkiewicz, Z., & Purwin, C. (2017). Polyphenols in monogastric nutrition – A review. Annals of Animal Science, 17(1), 41–58.
Oke, O. E., Akosile, O. A., Oni, A. I., et al. (2024). Oxidative stress in poultry production. Poultry Science, 103, 104003.
Omar, H. (2013). Mycotoxins-induced oxidative stress and disease. In Mycotoxins and Their Implications in Food Safety. InTechOpen.
Panda, A. K., & Cherian, G. (2014). Role of vitamin E in counteracting oxidative stress in poultry. The Journal of Poultry Science, 51(2), 109–117.
Scanes, C. G., & Dridi, S. (Eds.). (2022). Sturkie's Avian Physiology (7th ed.). Academic Press.
Schothorst Feed Research (SFR). (2024). Applied poultry nutrition: Minerals [Seminar presentation].
Shakeri, M., Cottrell, J. J., Wilkinson, S., et al. (2018). Betaine and antioxidants improve growth performance, breast muscle development and ameliorate thermoregulatory responses to cyclic heat exposure in broiler chickens. Animals, 8(10), 162.
Slauch, J. M. (2011). How does the oxidative burst of macrophages kill bacteria? Still an open question. Molecular Microbiology, 80(3), 580–583.
Surai, P. F., Kochish, I. I., Fisinin, V. I., & Kidd, M. T. (2019). Antioxidant defence systems and oxidative stress in poultry biology: An update. Antioxidants, 8(7), 235.
Surai, P. F. (2020). Antioxidant systems in poultry biology: Heat stress, vitagenes and performance. Wageningen Academic Publishers.
Wang, Y., Zhao, H., Liu, J., et al. (2018). Copper- and arsenic-induced oxidative stress and immune imbalance are associated with activation of heat shock proteins in chicken intestines. International Immunopharmacology, 60, 64–75.
Niu, Y., Zhang, J. F., Wan, X. L., et al. (2019). Effect of fermented Ginkgo biloba leaves on nutrient utilisation, intestinal digestive function and antioxidant capacity in broilers. British Poultry Science, 60(1), 47–55.
Zaboli, G., Huang, X., Feng, X., & Ahn, D. U. (2019). How can heat stress affect chicken meat quality? A review. Poultry Science, 98(3), 1551–1556.
Zhao, H., He, Y., Li, S., et al. (2017). Subchronic arsenism-induced oxidative stress and inflammation contribute to apoptosis through mitochondrial- and death receptor-dependent pathways in chicken immune organs. Oncotarget, 8(25), 40327–40344.
Zulkifli, I., Al‑Aqil, A., Omar, A. R., Sazili, A. Q., & Rajion, M. A. (2011). Crating and heat stress influence blood parameters and heat shock protein 70 expression in broiler chickens showing different resistance to heat stress. Poultry Science, 90(9), 2045–2050.